



L'F-actine médie la différenciation ostéogénique des cellules souches mésenchymateuses sur nanotubes de TiO₂ via MKL1 et YAP/TAZ
Résumé
Le titane et les alliages de titane sont largement utilisés dans les implants orthopédiques. La modification de la nanotopographie fournit une nouvelle stratégie pour améliorer l'ostéointégration des substrats de titane. La polymérisation de l'actine filamentaire (F-actine), en tant que structure de chargement mécanique, est généralement considérée comme impliquée dans la migration cellulaire, l'endocytose, la division cellulaire et le maintien de la forme cellulaire. Si la F-actine est impliquée et comment elle fonctionne dans la différenciation ostéogénique des cellules souches mésenchymateuses (CSM) induite par les nanotubes reste à élucider. Dans cette étude, nous avons fabriqué des nanotubes de TiO₂ sur la surface d'un substrat de titane par oxydation anodique et caractérisé leurs caractéristiques par microscopie électronique à balayage (MEB), analyse par dispersion d'énergie des rayons X (EDS) et microscopie à force atomique (AFM). La coloration par phosphatase alcaline (ALP), le Western blot, la qRT-PCR et la coloration par immunofluorescence ont été réalisées pour explorer le potentiel ostéogénique, le niveau de F-actine et l'expression de MKL1 et YAP/TAZ. Nos résultats ont montré que le diamètre interne et la rugosité des nanotubes de TiO₂ augmentaient avec l'augmentation de la tension d'oxydation anodique de 30 à 70 V, tandis que leur hauteur était constamment de 2 μm. De plus, plus le diamètre du tube est grand, plus forte est la capacité des nanotubes de TiO₂ à promouvoir la différenciation ostéogénique des CSM. L'inhibition de la polymérisation de la F-actine par Cyto D a inhibé la différenciation ostéogénique des CSM ainsi que l'expression des protéines contenues dans les complexes d'adhérence focale tels que la vinculine (VCL) et la kinase d'adhérence focale (FAK). En revanche, après traitement par Jasp, la polymérisation de la F-actine a augmenté l'expression de RhoA et des facteurs de transcription YAP/TAZ. Sur la base de ces données, nous avons conclu que les nanotubes de TiO₂ facilitaient la différenciation ostéogénique des CSM, et cette capacité était renforcée avec l'augmentation du diamètre des nanotubes dans une certaine plage (30-70 V). La F-actine médiait ce processus via MKL1 et YAP/TAZ.
Introduction
Le titane et les alliages de titane, en raison de leur excellente biocompatibilité, résistance à la corrosion et propriétés mécaniques, sont largement utilisés dans les applications cliniques telles que les remplacements articulaires totaux et les implants dentaires [1-3]. Cependant, il reste encore de nombreux défis à résoudre, incluant le desserrage aseptique et l'infection [4, 5]. Ces dernières années, un certain nombre d'études visant à améliorer l'ostéointégration et les propriétés antibactériennes ont été menées. Par exemple, le revêtement MoS₂/PDA-RGD sur les implants en titane peut non seulement promouvoir l'intégration d'un implant en titane avec l'os hôte mais aussi inhiber la croissance bactérienne avec une haute efficacité [6]. De plus, la topographie de surface a attiré de plus en plus d'attention, et la modification topographique diffère des modifications chimiques en ne changeant que la structure à micro- et nano-échelle. La stimulation des signaux chimiques sur les cellules est instable et cytotoxique. En comparaison, les signaux physiques sûrs et contrôlables peuvent éviter certains effets secondaires causés par les molécules chimiques. Par conséquent, la modification topographique de la surface des implants et la régulation de l'ostéointégration par la structure topographique peuvent fournir une nouvelle façon de résoudre le problème clinique de la mauvaise ostéointégration après l'implantation de prothèses.
Dans le domaine de l'ingénierie des tissus osseux et de la régénération osseuse, l'interaction cellule-morphologie est considérée comme une stratégie de gestion prometteuse pour le contrôle précis de la fonction et de la différenciation des cellules souches. En même temps, l'os lui-même a une hiérarchie élégante dans la gamme nanométrique et micrométrique [7]. Par conséquent, la morphologie de surface peut fournir une niche similaire, qui peut imiter la structure osseuse naturelle et promouvoir la différenciation ostéogénique des cellules souches mésenchymateuses sur la surface de l'os hôte et de l'implant. Les morphologies de surface peuvent consister en de nombreuses structures différentes, incluant les nanotubes, nanofils, nanopores, etc. En particulier, les réseaux de nanotubes ont attiré un intérêt extensif dans de nombreux domaines ces dernières années en raison de leurs caractéristiques de surface uniques, telles que le rapport surface/volume élevé, la plasticité biologique et la haute capacité d'adsorption. Par exemple, une nouvelle étude montre que les nanotubes de nitrure de bore (BNNT) constituent un matériau sensible aux gaz qui peut être utilisé comme capteur de gaz pour surveiller le fonctionnement des transformateurs en détectant la composition et le contenu des gaz dissous dans l'huile [8]. En biomédecine, la topographie de surface est aussi capable de diriger les comportements cellulaires, incluant la migration cellulaire, l'adhésion, la prolifération et la différenciation. Les dernières études révèlent que la topographie à l'échelle nanométrique peut diriger les cellules souches mésenchymateuses (CSM) à se différencier en ostéoblastes afin de renforcer l'ostéointégration précoce [9-12]. Il est même rapporté que la modification de surface combinée micro- et nano-échelle peut causer la différenciation des CSM en cellules musculaires lisses contractiles [13]. Cependant, les mécanismes moléculaires de la façon dont la topographie de surface dirige le destin cellulaire n'ont pas encore été élucidés, ce qui est important pour l'évaluation de la sécurité des matériaux et la conception des matériaux.
L'actine filamentaire (F-actine), aussi appelée microfilament, est l'un des trois composants majeurs du cytosquelette dans les cellules eucaryotes. Elle est composée de polymères d'actine globulaire (G-actine), modifiée par de nombreuses autres protéines. La F-actine a une polarité structurale due au fait que toutes les sous-unités du microfilament pointent vers la même extrémité. L'extrémité barbue est dirigée vers un monomère adjacent différent, tandis que l'extrémité pointue possède une sous-unité d'actine avec le site de liaison ATP exposé. C'est-à-dire que l'ATP est impliqué dans le processus de transformation entre G-actine et F-actine. Ce processus est dans un équilibre dynamique, avec polymérisation et dépolymérisation se produisant simultanément, aussi connu sous le nom de « treadmilling », souvent vu dans les lamellipodes et filopodes [14]. Par conséquent, il est évident que la dynamique de l'actine joue un rôle important dans de telles fonctions cellulaires que la migration cellulaire, la division cellulaire et le maintien de la forme cellulaire. Cependant, la F-actine n'agit pas seulement comme une structure physique supportant le chargement mécanique mais participe aussi à d'autres comportements biologiques tels que la transduction de signal et l'expression génique. Des preuves accumulées démontrent que la F-actine peut convertir les signaux physiques en signaux chimiques en interagissant avec d'autres protéines [15-18]. Par exemple, la reconstruction biomécanique et géométrique favorise l'apoptose des cellules tumorales en empêchant la superposition de la polymérisation du monomère d'actine en F-actine [15]. Les ultrasons augmentent l'ostéogenèse des cellules souches mésenchymateuses humaines en inhibant la dépolymérisation de la F-actine [16]. Notre étude précédente a aussi montré que la contrainte mécanique augmente la stabilité de la F-actine [17]. Parce que la structure creuse des nanotubes fournit moins de sites d'adhésion pour les cellules, le réarrangement du cytosquelette est inévitable afin de maintenir l'équilibre biomécanique. Par conséquent, nous avons définitivement des raisons de croire que la F-actine est susceptible de médier la différenciation cellulaire induite par la nanotopographie.
Dans cette étude, nous avons fabriqué des nanotubes de TiO₂, modifié leur topographie par oxydation anodique, et exploré leur capacité à promouvoir la différenciation ostéogénique des CSM. Ensuite, nous avons investigué si la F-actine joue un rôle critique dans la mécanotransduction. La cytochalasine D (Cyto D), qui se lie compétitivement à l'extrémité barbue de la F-actine pour empêcher la G-actine de s'incorporer dans le filament, a été utilisée pour inhiber la polymérisation de la F-actine, et la jasplakinolide (Jasp) a été utilisée pour améliorer la stabilisation de l'assemblage d'actine. De plus, nous voulions aussi élucider comment la F-actine fonctionne dans le changement des signaux physiques en signaux biochimiques. Basés sur les résultats de notre étude précédente, nous avons émis l'hypothèse que la voie MAPK pourrait être impliquée dans ce processus [17]. Les facteurs de transcription tels que la protéine associée à Yes (YAP)/coactivateur transcriptionnel avec motif de liaison PDZ (TAZ) et MKL1, qui sont considérés comme des mécanosenseurs et mécanotransducteurs, étaient aussi les sujets de notre étude pour dépister comment la F-actine influence le destin des cellules souches, car certaines études dans d'autres domaines impliquaient qu'ils étaient liés à la F-actine [19-21]. En général, nous espérons clarifier le rôle de la F-actine dans le processus de différenciation des cellules souches induite par les nanotubes, afin de guider la conception des matériaux et l'évaluation de la biosécurité des implants modifiés par les nanotubes.
Matériaux et méthodes
Fabrication des nanotubes de TiO₂
Des tranches de titane pur (pureté 99,9 %, épaisseur 2 mm ; Shengshida, Hebei, Chine), utilisées comme substrat, ont été polies avec du papier de carbure de silicium de grains n° 400 et 1500. Les échantillons ont ensuite été lavés séquentiellement avec de l'acétone, de l'alcool anhydre et de l'eau déionisée dans une machine de nettoyage ultrasonique, et finalement séchés à température ambiante pendant 3 h. Pour fabriquer la nanotopographie, les échantillons prétraités ont été fixés comme anode, tout en utilisant une pièce de platine comme cathode de contrepartie dans une solution aqueuse d'électrolyte de 0,15 M NH₄F et 90 % de glycol pendant 1 h. La tension d'anodisation était une tension constante de 30, 40, 50, 60 ou 70 V. Après oxydation anodique, chaque échantillon a été rincé avec de l'eau déionisée pendant 30 min et lavé avec de l'alcool anhydre dans une machine de nettoyage ultrasonique pendant 15 min. Finalement, tous les échantillons ont été stérilisés dans un autoclave à 120 °C pendant 1 h puis humidifiés avec le milieu de culture avant utilisation.
Le mécanisme de réaction de la fabrication des nanotubes n'est pas clair, et la théorie actuelle dominante est la théorie de la dissolution assistée par champ. La formation des réseaux de nanotubes est le résultat d'un équilibre dynamique sous l'action de l'oxydation par champ, la dissolution par champ et la dissolution chimique (Fig. 1b). Le processus d'anodisation peut être décrit comme suit : dans la première étape, une couche barrière d'oxyde est formée sur l'interface électrolyte-métal :
Ti⁴⁺ + 2H₂O → TiO₂ + 4H⁺
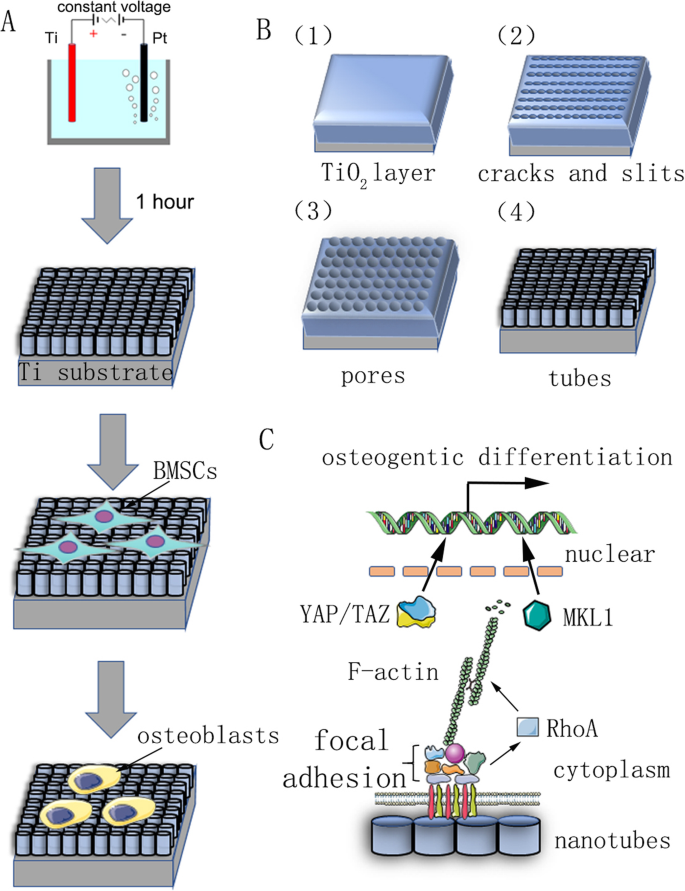
Ensuite, des fissures et fentes étroites apparaissent sur la surface en raison de la dissolution assistée par champ de la couche d'oxyde. La diffusion des ions F⁻ dans ces fissures et fentes augmente le taux de dissolution. Les fissures s'agrandissent et se connectent avec les fissures voisines. Finalement, le taux de formation et le taux de dissolution de la couche d'oxyde de titane atteignent un équilibre dynamique, et les nanotubes ne grandissent plus :
TiO₂ + 6F⁻ + 4H⁺ → [TiF₆]²⁻ + 2H₂O
Caractérisation de surface
Les échantillons fabriqués avec différentes tensions (30, 40, 50, 60 ou 70 V) ont été rincés avec de l'éthanol et de l'eau déionisée pendant 15 min, puis séchés à température ambiante. La microscopie électronique à balayage (SEM450, FEI Nova Nano SEM ; Thermo Fisher Scientific, Waltham, MA, USA) a été utilisée pour caractériser la structure de surface et mesurer le diamètre interne et la hauteur des nanotubes après revêtement des échantillons avec une fine couche d'or. Parallèlement, l'analyse par dispersion d'énergie des rayons X (EDS) a été réalisée pour analyser la composition élémentaire des nanotubes. La microscopie à force atomique (AFM, NanoManVS, Bruker Nano Surfaces, Bruker MicroCT, Kontich, Belgique) a été utilisée pour étudier la morphologie de surface et la rugosité de surface des échantillons. Trois zones différentes ont été sélectionnées sur chaque échantillon et les mesures ont été répétées trois fois.
Culture cellulaire
Des rats mâles Sprague-Dawley (SD) de quatre semaines ont été achetés au centre d'animaux expérimentaux de l'Hôpital Neuvième de Shanghai (Shanghai, Chine). Les cellules souches mésenchymateuses de moelle osseuse de rat (CSM-MO) ont été isolées aseptiquement des fémurs et tibias. Les CSM-MO ont été purifiées et davantage expandues dans le milieu α-MEM (α-minimal essential medium ; Hyclone, Logan, UT, USA) contenant 10 % (v/v) de sérum fœtal bovin (FBS) (Gibco/Life Technologies, Carlsbad, CA, USA), 100 mg/mL de streptomycine (Gibco) et 100 U/mL de pénicilline (Gibco), et incubées à 37 °C dans une atmosphère humidifiée consistant en 95 % d'air et 5 % de CO₂. Le milieu de culture a été renouvelé tous les 2 jours, et les cellules ont été trypsinisées et sous-cultivées à 80 % de confluence. Toutes les cellules utilisées dans cette étude étaient entre les passages 3 et 5. Le milieu d'induction ostéogénique était composé de milieu de croissance supplémenté avec 100 nM de dexaméthasone, 10 mM de β-glycérophosphate et 50 mM d'acide ascorbique (Sigma-Aldrich, St Louis, MO, USA).
Essai de prolifération cellulaire
Les tranches de titane modifiées par nanotubes de TiO₂ ont été découpées en formes circulaires et placées dans les puits d'une plaque de culture cellulaire à 24 puits. Les CSM-MO entre passages 3-5 ont été cultivées sur les nanotubes de TiO₂ à une densité de 3 × 10⁴ cellules/disque dans soit le milieu de croissance soit le milieu ostéogénique. Après 2 jours de culture cellulaire, la cytochalasine D (Cyto D, Sigma-Aldrich) et la jasplakinolide (Jasp, Sigma-Aldrich), utilisées pour perturber la polymérisation de la F-actine, ont été ajoutées au milieu tous les jours pendant 3 jours. La concentration finale et le temps de travail de Cyto D et Jasp étaient de 5 μM, 1 h et 2 μM, 3 h respectivement. Le milieu de culture a été renouvelé après incubation avec les réactifs. La viabilité et la prolifération cellulaire ont été évaluées en utilisant le kit Cell Counting Kit-8 (CCK8) (Dojindo, Kumamoto, Japon) 12 h après le traitement par Cyto D ou Jasp. Les cellules ont été incubées avec 10 % (v/v) de solution CCK8 pendant 2 h dans un incubateur cellulaire à 37 °C sous 5 % de CO₂. Ensuite, nous avons transféré 100 μL du mélange de réaction dans les puits d'une plaque à 96 puits et l'absorbance (OD) du produit de colorant formazan dans la culture a été mesurée à 450 nm en utilisant un spectrophotomètre UV-visible Multiscan (Safire2 ; TECAN, Mannedorf, Suisse). En outre, nous avons aussi compté les nombres approximatifs de cellules en utilisant un compteur cellulaire automatisé (AMQAX1000, Life Technologies). Avant le comptage cellulaire, les CSM-MO ont été détachées enzymatiquement des nanotubes de TiO₂ et colorées avec le bleu de trypan (Sigma-Aldrich).
Coloration par phosphatase alcaline et analyse d'activité ALP
Les CSM-MO ont été ensemencées sur cinq tranches de titane modifiées par nanotubes de TiO₂ différentes (30, 40, 50, 60 ou 70 V) à une densité de 3 × 10⁴ par puits et cultivées dans le milieu ostéogénique. Les réactifs ont été ajoutés comme décrit ci-dessus. Après 7 jours d'incubation, les CSM-MO cultivées sur les nanotubes de TiO₂ ont été lavées trois fois avec du PBS, fixées avec 4 % de paraformaldéhyde, et incubées dans la solution de travail de phosphatase alcaline (ALP) d'un kit ALP selon les instructions du fabricant (Hongqiao, Shanghai, Chine). Les résultats ont été observés sous un microscope stéréo après lavage avec du PBS.
Pour l'analyse d'activité ALP, les cellules ont d'abord été lysées avec un tampon RIPA sans inhibiteurs de protéase et phosphatase, puis les lysats centrifugés ont été dosés en utilisant un kit de dosage ALP (Beyotime Institute of Biotechnology, Jiangsu, Chine) suivant le protocole fourni. L'activité a été finalement normalisée à la concentration en protéines du lysat correspondant.
Immunocytochimie
Après 3 jours de traitement par Cyto D et Jasp, les CSM-MO ont été fixées avec 4 % de paraformaldéhyde pendant 20 min à température ambiante et puis lavées trois fois avec du PBS. Les cellules ont été perméabilisées avec 0,3 % Triton-X 100 pendant 30 min, lavées trois fois avec du PBS, et colorées avec de la phalloïdine conjuguée à la rhodamine pendant 1 h à température ambiante dans l'obscurité. Ensuite, les cellules ont été rincées avec du PBS, et contre-colorées avec DAPI (Beyotime Institute of Biotechnology) pendant 10 min à température ambiante. Suite à trois lavages supplémentaires avec du PBS, les échantillons ont été fixés sur une lame de verre et observés par microscopie confocale.
Western blot
Pour évaluer l'expression des protéines, les CSM-MO cultivées sur les nanotubes de TiO₂ ont été récoltées avec de la trypsine (Gibco). Les cellules ont été lavées trois fois avec du PBS et lysées avec un tampon RIPA supplémenté avec un cocktail d'inhibiteurs de protéase et phosphatase pendant 30 min sur glace. Le lysat a été collecté par centrifugation à 12 000×g pendant 15 min à 4 °C. La concentration des protéines totales dans le surnageant a été mesurée en utilisant un kit de dosage d'acide bicinchoninique (BCA) (Beyotime) selon les instructions du fabricant. Le tampon de chargement a été ajouté aux échantillons de protéines comme ci-dessus, qui ont ensuite été bouillis à 95 °C pendant 15 min. Pour l'analyse par Western blot, 10 μL de la préparation de protéines a été chargé sur un gel SDS-PAGE à 12,5 % (EpiZyme Inc., Cambridge, MA, USA) et soumis à l'électrophorèse à 120 V pendant 1 h, puis électrotransféré sur une membrane de polyvinylidène difluorure (PVDF) à 250 mA pendant 2 h. Les membranes ont ensuite été bloquées avec 5-10 % de lait écrémé en poudre dans TBST pendant 1 h sur un agiteur à température ambiante et incubées avec l'anticorps primaire dilué dans le tampon de dilution (Beyotime) à 4 °C pendant la nuit. Ensuite, l'anticorps secondaire conjugué à la fluorescence dilué dans le tampon de dilution a été ajouté aux membranes après trois lavages avec TBST pendant 5 min, et les membranes ont ensuite été incubées à température ambiante pendant 1 h dans l'obscurité. Les bandes de protéines ont été détectées par un système d'imagerie à fluorescence infrarouge bicolore (Odyssey, LiCor Biosciences, Lincoln, NE, USA). En particulier, si les bandes de la protéine de référence interne étaient unifiées, la membrane était décapée et resondée avec un autre anticorps primaire, suivi du même processus. Nous avons utilisé l'anticorps GAPDH comme notre protéine de référence interne pour normaliser l'expression des protéines, et les autres anticorps primaires utilisés dans cette étude étaient anti-vinculine (dilution 1:1000, Abcam, Cambridge, MA, USA), anti-FAK (dilution 1:1000, Cell Signaling Technology, Danvers, MA, USA), anti-Runx2 (dilution 1:1000, Cell Signaling Technology), anti-RhoA (dilution 1:1000, Cell Signaling Technology), anti-F-actine (dilution 1:500, Abcam), anti-Osx (dilution 1:500, Abcam) et anti-pYAP (dilution 1:1000, Cell Signaling Technology). Les anticorps secondaires étaient anticorps de chèvre anti-souris IgG H&L (IRDye® 680RD, dilution 1:5000, Abcam) et anticorps de chèvre anti-lapin IgG H&L (IRDye® 680RD, dilution 1:5000, Abcam).
PCR quantitative en temps réel
La PCR quantitative en temps réel a été réalisée au jour 7 pour évaluer l'expression génique du facteur de transcription lié à runt 2 (Runx2), Osterix (Osx), Alp, ostéocalcine (OCN), RhoA, YAP, TAZ, vinculine (VCL), kinase d'adhérence focale (FAK) et leucémie mégacaryoblastique 1 (MKL1) dans les cellules cultivées dans le milieu ostéogénique sur les nanotubes de TiO₂. L'ARN total a été extrait des cellules en utilisant un kit ARN total (R6812-01HP, Omega Bio-Tek Inc., Norcross, GA, USA). La concentration et la pureté des échantillons d'ARN ont été déterminées par densité optique à une longueur d'onde de 260 et seuls les échantillons présentant à la fois les ratios A260/280 et A260/230 supérieurs à 1,8 ont été analysés. Les échantillons d'ARN ont été rétro-transcrits en ADNc en utilisant un kit de synthèse d'ADNc qScript (Takara, Shiga, Japon) selon les instructions du fabricant. La PCR quantitative en temps réel a été réalisée avec SYBR® Premix Ex Taq™ (Takara) en utilisant un système PCR en temps réel QuantStudio 6 Flex (Life Technologies). GAPDH, un gène de maintenance, a été utilisé comme référence interne. Les données ont été analysées en utilisant la méthode de comparaison Ct (2^(-ΔΔCt)) et exprimées comme changements de倍数 par rapport au contrôle. Les séquences des amorces utilisées sont listées dans le Tableau 1.
Analyse statistique
Toutes les données sont représentatives d'au moins trois expériences indépendantes utilisant des échantillons en triplicat sauf indication contraire. Les données sont exprimées comme la moyenne ± écart type (SD). Les différences entre groupes ont été évaluées par analyse de variance à un facteur suivie du test post-hoc Student-Newman-Keuls ou du test t de Student. Les valeurs P < 0,05 étaient considérées comme statistiquement significatives.
Résultats
Caractérisation de surface
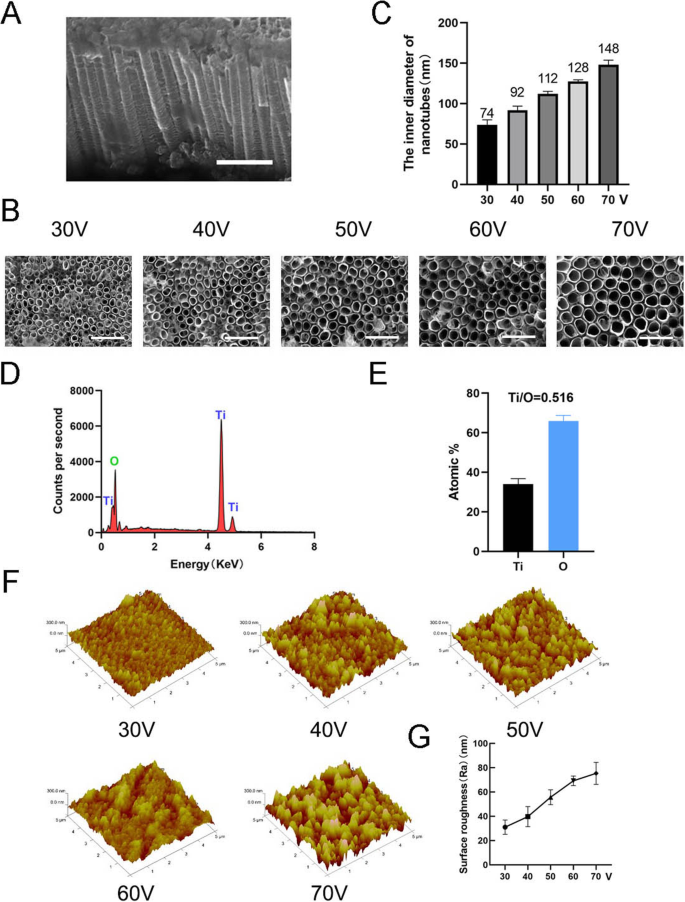
Pour fabriquer la nanotopographie, des nanotubes de TiO₂ ont été formés sur un substrat de titane pur en utilisant un équipement d'oxydation anodique à différentes tensions constantes (30, 40, 50, 60 et 70 V) pendant 1 h (Fig. 1). Un réseau uniformément distribué de nanotubes auto-assemblés a été observé par microscopie électronique à balayage (MEB). Les vues latérale et supérieure des nanotubes sont montrées en Fig. 2a, b. La hauteur des nanotubes dans tous les échantillons de cette étude était d'environ 2 μm, tandis que les diamètres internes des nanotubes étaient d'environ 74 nm (30 V), 92 nm (40 V), 112 nm (50 V), 128 nm (60 V) et 148 nm (70 V) (Fig. 2c). Cela indiquait que la hauteur des nanotubes était liée au temps d'oxydation anodique et le diamètre interne était lié à la tension d'oxydation anodique. L'analyse par dispersion d'énergie des rayons X (EDS) a ensuite été réalisée pour analyser la composition élémentaire des nanotubes. Cela a montré que les nanotubes consistent en seulement deux éléments, O et Ti (Fig. 2d, e). La microscopie à force atomique (AFM) a été utilisée pour détecter les structures nanotubulaires et mesurer l'écart moyen arithmétique du profil des nanotubes comme rugosité de surface (Ra) (Fig. 2f). Les données ont montré que la rugosité de surface des nanotubes augmentait avec l'augmentation du diamètre (c.-à-d., la tension d'oxydation anodique) (Fig. 2g).
Les nanotubes de TiO₂ induisent la différenciation ostéogénique des CSM
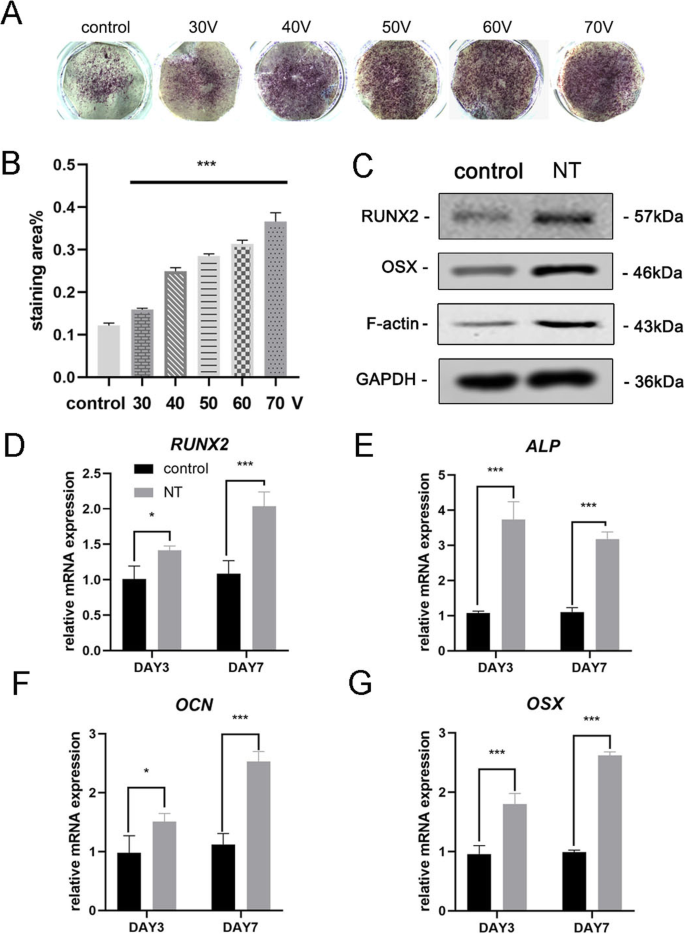
Après 7 jours d'ostéoinduction, la coloration ALP a d'abord été réalisée pour évaluer la différenciation ostéogénique des CSM. Les résultats de coloration ont montré que les CSM cultivées sur les nanotubes de TiO₂ avaient une activité ALP plus élevée que les cellules cultivées sur un substrat de titane lisse (groupe contrôle) (Fig. 3a). L'analyse statistique de la surface de coloration a démontré que la capacité des nanotubes à induire la différenciation ostéogénique était significativement améliorée comparée au groupe contrôle. Simultanément, nous avons observé une tendance selon laquelle, dans la gamme de diamètres de cette expérience, plus le diamètre des nanotubes de TiO₂ est grand, plus forte est la capacité à induire la différenciation ostéogénique (Fig. 3b). Ainsi, le groupe 70 V a été utilisé dans les expériences subséquentes pour mieux afficher les résultats. Ensuite, nous avons analysé l'expression des gènes ostéogéniques aux jours 3 et 7. Les CSM cultivées sur les nanotubes de TiO₂ pendant 3 jours et 7 jours ont toutes deux montré une promotion significative de l'expression des gènes ostéogéniques (RUNX2, ALP, OCN et OSX) comparées au groupe contrôle (Fig. 3d-g). Les résultats de Western blot ont confirmé que l'expression des protéines RUNX2 et OSX augmentait aussi après 7 jours d'ostéoinduction (Fig. 3c). Intéressant, nous avons trouvé que la F-actine était surexprimée dans le groupe nanotubes de TiO₂. Par conséquent, il était évident que les nanotubes de TiO₂ dirigeaient les CSM vers la différenciation ostéoblastique, ce qui était lié au diamètre des nanotubes. Nos résultats suggéraient aussi l'implication de la F-actine dans ce processus.
La F-actine médie la différenciation ostéoblastique des CSM sur les nanotubes de TiO₂
Pour explorer davantage si la F-actine était impliquée dans la différenciation cellulaire induite par la nanotopographie, nous avons utilisé deux réactifs, la jasplakinolide (Jasp) et la cytochalasine D (Cyto D), pour réguler la polymérisation de la F-actine de manière positive et négative respectivement. Les photomicrographies confocales de coloration par Rhodamine-Phalloidine ont montré que la F-actine dans le groupe traitement Cyto D était presque dépolymérisée et les structures fibreuses étaient rarement vues, tandis que Jasp stabilisait et polymérisait la F-actine, vérifié par des structures plus distinctes et plus brillantes de type faisceau que celles observées dans le groupe contrôle (Fig. 5a). En plus, l'analyse par Western blot a aussi confirmé que l'expression de la protéine F-actine était affectée, ce qui a prouvé que Cyto D et Jasp agissaient tous deux comme prévu (Fig. 5b). L'essai de prolifération cellulaire a montré que Cyto D inhibait significativement la prolifération cellulaire, tandis que Jasp favorisait la croissance cellulaire (Fig. 4a). Les résultats de comptage cellulaire étaient cohérents avec cette découverte (Fig. 4b).
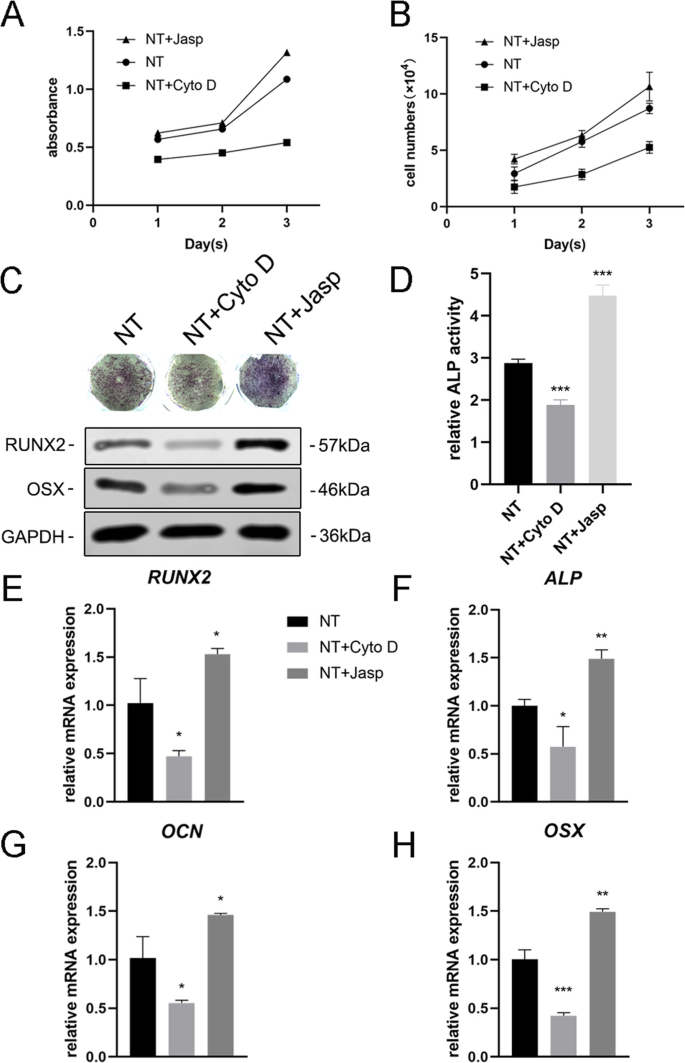
Ensuite, nous avons évalué la capacité des CSM à se différencier en ostéoblastes pour investiguer si la F-actine médiait ce processus. Nous avons d'abord détecté l'ALP comme marqueur précoce de l'ostéogenèse. Comparé au groupe contrôle, le traitement Cyto D a réduit l'expression de l'ALP et son activité tandis que celle dans le groupe traitement Jasp était surexprimée (Fig. 4c, d). Cohérent avec ce résultat, le traitement Jasp a entraîné une augmentation des niveaux de protéines RUNX2 et OSX tandis que Cyto D avait l'effet inverse (Fig. 4c). En accord avec ceci, les niveaux d'expression d'ARNm des gènes ostéo-spécifiques, incluant RUNX2, ALP, OCN et OSX, montraient la même tendance après traitement médicamenteux (Fig. 4e-h). Au total, ces données indiquaient que la F-actine jouait un rôle important dans le processus de différenciation ostéogénique des CSM induite par les nanotubes de TiO₂. La promotion de la dépolymérisation de la F-actine inhibait la différenciation ostéoblastique induite par la nanotopographie tandis que la stabilisation et la polymérisation de la F-actine amélioraient la différenciation ostéoblastique.
La F-actine régule la différenciation ostéoblastique des CSM sur les nanotubes de TiO₂ via MKL1 et YAP/TAZ
Pour disséquer le mécanisme sous-jacent impliquant la F-actine dans la régulation du destin des CSM, nous avons investigué les protéines/molécules qui interagissent directement avec la F-actine ou affectent la polymérisation de la F-actine. D'abord, nous avons essayé d'identifier comment la nanotopographie affectait l'équilibre entre F-actine et G-actine. Les nanotubes de TiO₂ comme signal physique diffèrent des signaux chimiques perméables à la membrane et doivent donc utiliser certains composants de la membrane cellulaire pour transmettre les stimuli dans les cellules. Des preuves accumulées indiquent que le complexe d'adhérence focale, incluant l'intégrine, la taline, la kinase d'adhérence focale (FAK), la vinculine (VCL), la tensine et d'autres protéines, fonctionne comme un porteur de signal, qui informe les cellules sur l'état de la matrice extracellulaire (MEC) et affecte ainsi leur comportement biologique [22, 23]. Plus important encore, la F-actine se lie aux intégrines à travers de tels complexes d'adhérence focale, et forme ainsi des liaisons mécaniques entre les faisceaux d'actine intracellulaires et la MEC [24]. Par conséquent, nous avons ensuite analysé l'expression des composants du complexe d'adhérence focale. Les résultats ont montré que l'expression des protéines et de l'ARNm de VCL et FAK étaient cohérentes avec le changement de F-actine, indiquant que le complexe d'adhérence focale était impliqué dans le processus de différenciation ostéogénique des CSM induite par les nanotubes de TiO₂ (Figs. 5b et 6a, b). En outre, nous avons aussi trouvé que RhoA, une petite protéine GTPase dans la famille des GTPases Rho, était surexprimée dans le groupe traitement Jasp et inhibée par Cyto D (Figs. 5b et 6a, b). RhoA est une molécule importante de transduction de signal en amont dans la voie MAPK, et pourrait être régulée par FAK [25, 26]. La fonction principale de RhoA est de promouvoir la polymérisation et la stabilité des fibres de stress (F-actine) et l'assemblage du complexe d'adhérence focale [27]. Ensemble, ces données suggéraient que les nanotubes de TiO₂ pouvaient influencer la polymérisation de la F-actine à travers le complexe d'adhérence focale et RhoA.
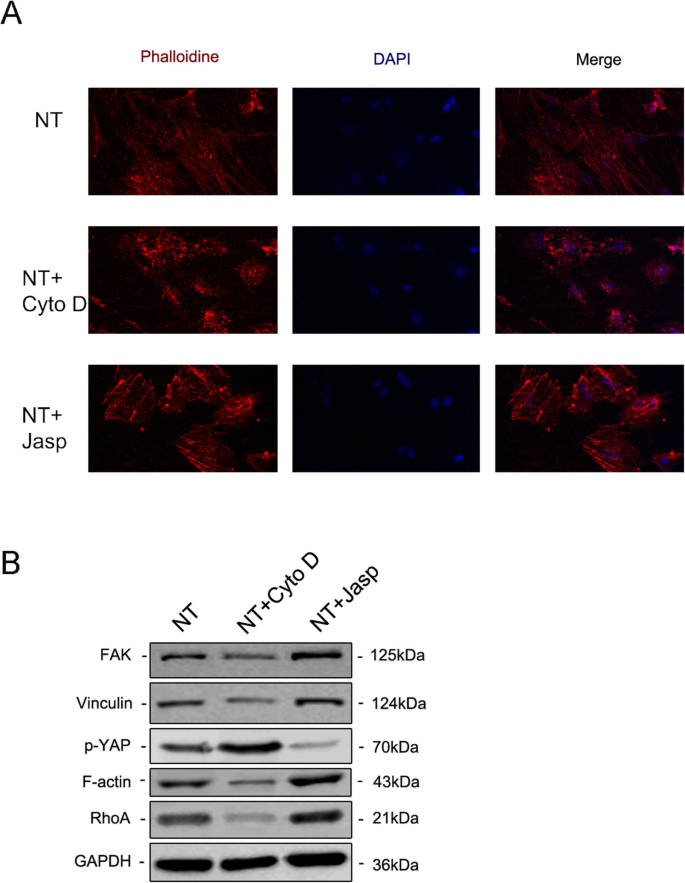
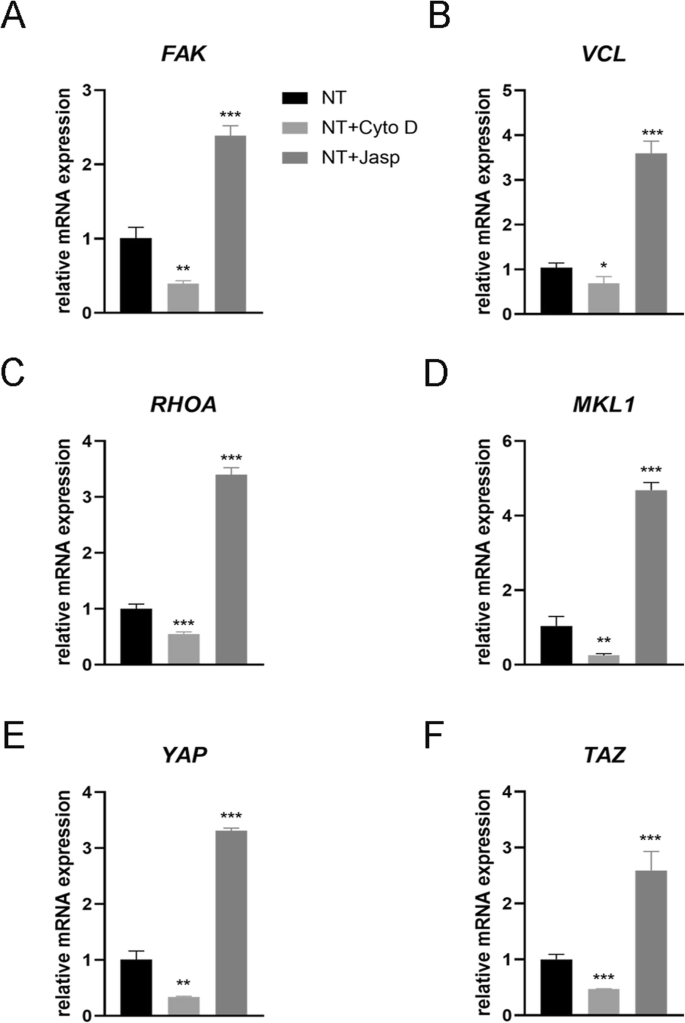
Mais comment la F-actine régule-t-elle le destin cellulaire ? La plupart des études ont démontré que la F-actine est impliquée dans la migration cellulaire, la division cellulaire, l'endocytose et surtout l'invasion des cellules tumorales [28-30]. Peu d'études ont suggéré que la F-actine pourrait aussi réguler la différenciation cellulaire, sans parler de son mécanisme moléculaire spécifique [31, 32]. Par conséquent, nous avons cherché des articles mentionnant les changements de F-actine et avons trouvé que YAP/TAZ, deux coactivateurs transcriptionnels étroitement liés dans la voie de signalisation Hippo, qui navettent entre le cytoplasme et le noyau, peuvent servir de mécanotransducteurs dans la régulation de la différenciation des CSM [33-35]. En outre, nous avons aussi trouvé que MKL1, un régulateur clé de la différenciation des cellules musculaires lisses, qui interagit avec le facteur de transcription facteur de réponse au sérum, pouvait se lier à la G-actine et aussi circuler entre le cytoplasme et le noyau [21, 36]. Nos résultats ont finalement identifié l'implication de YAP/TAZ et MKL1 dans la différenciation ostéoblastique induite par les nanotubes médiée par la F-actine (Figs. 5b et 6d-f). Intéressant, l'expression de la protéine YAP phosphorylée montrait la tendance opposée, indiquant que non seulement l'expression de YAP était changée, mais la phosphorylation de YAP était aussi changée par Cyto D et Jasp (Fig. 5b). Ce résultat était cohérent avec le rapport que la phosphorylation de YAP/TAZ pouvait être séquestrée dans le cytoplasme [35].
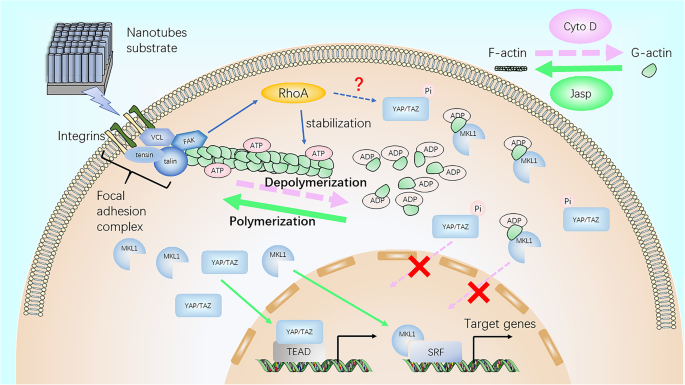
En résumé, nos résultats ont préliminairement démontré que la F-actine régulait la différenciation ostéoblastique des CSM sur les nanotubes de TiO₂ via MKL1 et YAP/TAZ (Fig. 7).
Discussion
Le titane et les alliages de titane sont les matériaux métalliques les plus largement utilisés dans les implants orthopédiques cliniques en raison des bonnes propriétés du titane [3]. Cependant, le desserrage aseptique est encore un problème urgent à résoudre et à améliorer, et la clé réside probablement dans l'amélioration de l'intégration de l'implant et de l'os hôte. Les études précédentes ont montré que le revêtement de surface et la modification ou l'immobilisation de molécules biofonctionnelles seront bénéfiques pour l'ostéointégration [37]. Récemment, la topographie de surface des implants a attiré l'attention de nombreux chercheurs grâce aux études sur la réponse cellulaire aux signaux physiques [9-11, 13, 38]. Dans cette étude, nous avons démontré la capacité des nanotubes à promouvoir la différenciation ostéogénique des CSM, et cette capacité était améliorée avec l'augmentation du diamètre interne des nanotubes (30-70 V). Cela aidera à guider le diamètre des nanotubes sur la surface des implants.
En tant que structure topographique, les nanotubes changent d'abord les propriétés physiques du matériau, telles que la capacité d'adsorption et la conductivité électrique et thermique. Ces propriétés physiques déterminent leur application dans le domaine industriel. Par exemple, la plupart des transformateurs de puissance haute tension ont besoin d'être remplis avec un matériau isolant, qui est généralement de l'huile de transformateur ou du gaz isolant. Lorsque l'isolation d'un transformateur échoue en raison de surchauffe et de décharge partielle, un accident de décharge grave se produira. Par conséquent, trouver une méthode efficace qui détecte avec précision la concentration et les types de gaz dissous ou composants de décomposition de gaz isolant dans un transformateur est nécessaire pour surveiller l'état de fonctionnement du transformateur [8, 39-41]. L'approche traditionnelle est de chercher des matériaux avec une bonne adsorption de gaz dans les éléments de transition, qui sont riches en électrons d, tels que Pd(1 1 1) [39]. De nos jours, les nanotubes sont largement étudiés pour leurs bonnes propriétés d'adsorption de gaz. He et al. ont trouvé que CuO-BNNT était approprié pour l'adsorption de C₂H₂, en raison de son adsorption plus forte sur C₂H₂ [8]. Pendant ce temps, TiO₂ lui-même peut être un matériau de détection de gaz. Gui et al. ont trouvé que le TiO₂ dopé Co améliorait davantage la capacité d'adsorption de gaz et exhibait une capacité d'adsorption supérieure et un changement de conductivité vers les molécules de C₂H₄ [40]. Conformément à cette étude, le graphène dopé Mn exhibait aussi une conductivité améliorée et une capacité supérieure de détection de C₂H₂ et CO que le graphène pur [41]. La recherche ci-dessus indique que les nanotubes de TiO₂ préparés dans notre expérience ont une application potentielle dans le domaine de la surveillance de l'état de fonctionnement d'un transformateur. Cependant, la capacité d'adsorption et la conductivité électrique des nanotubes aux gaz doivent être davantage étudiées, surtout si ces propriétés sont améliorées après dopage avec des éléments de transition (ex. Mn).
En plus de changer les propriétés physiques d'une surface, la morphologie à l'échelle nanométrique affecte aussi le comportement biologique des cellules attachées à elle. Les cellules adhèrent d'abord à la surface du matériau et puis migrent, prolifèrent et se différencient. Comparé à une surface plate, la structure creuse des nanotubes fournit moins de sites d'adhésion pour les cellules. Par conséquent, afin que les cellules adhèrent à la surface des nanotubes de manière stable et maintiennent l'équilibre biomécanique à l'intérieur de la cellule, le complexe d'adhérence focale commence à s'assembler et à mûrir, et la F-actine devient forte et stable.
La F-actine, un polymère linéaire de microfilament consistant en monomères de G-actine, est l'un des trois composants majeurs du cytosquelette. En tant que structure de chargement mécanique, la F-actine est généralement considérée comme impliquée dans la division cellulaire, la migration cellulaire, l'endocytose et l'invasion des cellules tumorales [28-30], mais certaines études récentes ont montré qu'elle peut aussi affecter la différenciation cellulaire [31-33, 36]. Par exemple, la dépolymérisation du cytosquelette d'actine par la simvastatine induit la différenciation chondrocytaire [31], et la dépolymérisation de l'actine améliore la différenciation adipogénique dans les cellules souches stromales humaines [32]. Nos résultats ont aussi révélé que, comparé au groupe contrôle, les CSM cultivées sur les nanotubes avaient des niveaux de F-actine plus élevés et une structure fibreuse plus évidente. Pendant ce temps, la promotion de la polymérisation de la F-actine par Jasp a amélioré la différenciation ostéogénique, tandis que la dépolymérisation de la F-actine a inhibé la différenciation ostéogénique, suggérant que la F-actine médiait la différenciation ostéoblastique des CSM induite par les nanotubes de TiO₂.
La F-actine peut être régulée par les Rho GTPases, membres de la superfamille Ras [23, 42], et Rho peut induire la réorganisation de l'actine à travers au moins deux effecteurs, ROCK et Dia. ROCK est activé en se liant à Rho-GTP et puis la chaîne légère de myosine (MLC), le substrat de ROCK, joue un rôle important dans l'assemblage de la F-actine. ROCK inhibe l'activité de la phosphatase MLC, conduisant à une augmentation de la phosphorylation de MLC, ce qui stimule l'activité ATPase de la myosine II et favorise l'assemblage de la F-actine. En outre, ROCK cible aussi la kinase LIM (LIMK). La LIMK phosphorylée inactiver la cofiline par phosphorylation, qui peut désassembler la F-actine dans son état actif. Un autre effecteur est Dia, un membre de la famille de protéines d'homologie formine (FH) qui contient deux domaines FH. Ces domaines contiennent de multiples motifs riches en proline qui se lient à la protéine de liaison à la G-actine, la profiline. Cette interaction contribue à la polymérisation de l'actine et l'organisation de la F-actine [42]. Nous avons détecté l'une des Rho GTPases, RhoA, et avons trouvé que l'expression de RhoA était cohérente avec le niveau de F-actine. Cependant, nous n'avons pas pu décrire clairement comment les nanotubes régulent l'expression de RhoA, car il y a beaucoup d'autres régulateurs, incluant la signalisation par intégrine, d'autres récepteurs d'adhésion, les récepteurs couplés aux protéines G (GPCR), les facteurs solubles tels que LPA, la signalisation par récepteur tyrosine kinase, etc. [43].
Sachant que la F-actine peut être régulée par RhoA, nous nous sommes ensuite demandés quel rôle l'adhérence focale jouait dans ce processus, car les complexes d'adhérence focale, contenant les intégrines, la taline, la vinculine, la paxilline et la kinase d'adhérence focale (FAK), sont formés et mûrissent quand les cellules s'attachent à la surface des nanotubes. Les intégrines sont des hétérodimères transmembranaires qui couplent la MEC aux autres protéines d'adhérence focale pour faciliter l'attachement cellulaire. Elles n'agissent pas simplement comme des crochets mais transmettent aussi à la cellule des signaux critiques sur la nature de son environnement, qui avec d'autres signaux tels que EGFR, incitent la cellule à prendre des décisions sur ses comportements biologiques. Ces signaux sont davantage transmis à la F-actine, qui est directement connectée aux complexes d'adhérence focale. D'une part, la morphologie à l'échelle nanométrique cause l'assemblage et la maturation du complexe d'adhérence focale. D'autre part, les kinases telles que FAK et les membres de la famille des kinases Src recruteront des molécules telles que CRK pour s'autoréguler l'assemblage et la maturation des complexes d'adhérence focale [44-46]. Nos résultats ont démontré que la formation et la maturation des complexes d'adhérence focale étaient altérées par la dépolymérisation de la F-actine, suggérant qu'il y avait une rétroaction des complexes d'adhérence focale vers l'assemblage d'actine en accord avec les rapports publiés.
Cependant, il ne faut pas ignorer que ces protéines contenues dans les complexes d'adhérence focale ont la fonction de transduction de signal [47]. C'est-à-dire que les nanotubes peuvent directement réguler l'expression génique par des cascades de signaux, et la F-actine peut juste participer ou être affectée par ce processus. Par exemple, le complexe kinase dual de FAK et Src peut réguler les Rho GTPases telles que RhoA. Cela montre que les nanotubes peuvent réguler RhoA à travers les intégrines et le complexe FAK/Src. En outre Src, une protéine kinase tyrosine non-récepteur, peut activer Ras (petite GTPase) en phosphorylant FAK au résidu tyrosine 925 [47, 48]. Ensuite, Ras active de nombreuses voies biochimiques, incluant la voie MAPK bien étudiée et la voie PI3K/AKT/mTOR. Dans la voie MAPK, Ras active c-Raf, suivi par la kinase de kinase de protéine activée par mitogène (MAP2K) et puis MAPK1/2, aussi connue comme kinase régulée par signal extracellulaire (ERK). ERK active à son tour des facteurs de transcription tels que le facteur de réponse au sérum (SRF) et c-Myc qui sont impliqués dans la régulation de la croissance et de la différenciation [49]. De plus, Runx2, un facteur de transcription clé dans la différenciation ostéogénique, peut aussi être régulé par ERK [50], et notre étude précédente a confirmé que la contrainte mécanique favorisait la différenciation ostéogénique des CSM-MO par la voie FAK-Erk1/2-Runx2 [17]. Par conséquent, nous ne pouvons pas exclure que ERK joue un rôle dans la différenciation ostéogénique induite par les nanotubes et une étude plus approfondie est encore nécessaire.
Alors, quel est exactement le rôle de la F-actine dans l'induction de la différenciation par les nanotubes, car son changement peut affecter la différenciation cellulaire ? Une possibilité est que le changement de l'assemblage de F-actine peut inversement réguler le niveau de FAK pour induire la différenciation ostéogénique par la voie FAK-Erk1/2-Runx2 comme décrit ci-dessus, car dans nos résultats, les complexes d'adhérence focale et la polymérisation d'actine montraient les mêmes tendances de changement, indiquant qu'ils agissent comme un tout en réponse à l'environnement extracellulaire. Cependant, d'autres possibilités existent aussi, et un certain nombre d'articles ont montré que MKL1 et YAP/TAZ agissent en aval de l'équilibre dynamique de l'actine [20, 51-54]. Tous les deux navettent entre le cytoplasme et le noyau, et peuvent aider à transduire les signaux du cytosquelette au noyau.
MKL1, aussi appelé facteur de transcription A lié à la myocardine, est sensible aux changements des niveaux de G-actine cytoplasmique. Quand les niveaux de G-actine monomérique cytoplasmique augmentent, la G-actine monomérique se lie à MKL1 et l'empêche de se lier à SRF et d'activer la transcription. Les gènes cibles de SRF incluent les actines telles que l'actine musculaire lisse (SMA) ainsi que d'autres protéines de liaison à l'actine, incluant les gènes précoces immédiats comme c-fos et egr1. Des études récentes ont démontré que le changement de l'activité SRF pouvait réguler l'adipogenèse en activant le facteur de transcription de l'adipogenèse récepteur activé par les proliférateurs de peroxysomes γ (PPARγ), et aussi réguler la formation osseuse via la signalisation IGF-1 et Runx2 [55, 56].
YAP et TAZ sont deux coactivateurs transcriptionnels dans la voie de signalisation Hippo, identifiée comme une voie régulatrice importante qui restreint la prolifération cellulaire, contrôlant ainsi la taille des organes et la morphogenèse [20]. Les gènes suppresseurs de tumeurs larges 1 et 2 (LATS1/2) les phosphorylent, créant ainsi un site de liaison pour les protéines 14-3-3, la liaison de laquelle empêche leur importation nucléaire [53, 54]. Par conséquent, les formes phosphorylées de YAP/TAZ sont séquestrées dans le cytoplasme, prévenant l'expression de gènes comme Ctgf et Areg. En outre, certaines études ont montré que YAP/TAZ peuvent interagir avec T-box 5 (TBX5), RUNX2 et p73 pour réguler l'expression génique [57-59]. De plus, l'adhésion cellulaire aux protéines de la matrice cellulaire a été montrée pour déclencher la localisation nucléaire de YAP à travers un axe intégrine/FAK/Src. Dans notre étude, les résultats suggéraient que cette voie était possiblement impliquée dans la différenciation induite par les nanotubes. Une étude plus approfondie sur les médiateurs en aval de l'axe intégrine/FAK/Src devrait être menée pour clarifier le mécanisme spécifique.
D'autre part, de plus en plus d'études illustrent que la F-actine interagit avec la signalisation Hippo, et inhibe d'une certaine manière la phosphorylation de YAP [54, 60], ce qui est cohérent avec nos résultats expérimentaux que la promotion de la polymérisation de la F-actine réduit l'expression de YAP phosphorylé. Nous émettons l'hypothèse que l'ATP impliqué dans le processus de transformation entre G-actine et F-actine peut aussi jouer un rôle important dans la phosphorylation de YAP, ce qui reste à étudier.
Après avoir compris les mécanismes moléculaires possibles ci-dessus, nous pouvons essayer d'expliquer certains des phénomènes expérimentaux trouvés dans cette étude. Nos résultats ont révélé que plus le diamètre des nanotubes est grand, plus forte est la capacité des nanotubes à promouvoir la différenciation ostéogénique. Cela est cohérent avec les recherches précédentes [61, 62]. La raison de ce phénomène est que plus le diamètre des nanotubes est grand, moins ils peuvent fournir de sites d'adhésion aux cellules, et plus grand est l'assemblage et la maturation des complexes d'adhérence focale. Avec ceux-ci, les fibres de stress faites de F-actine auront une plus grande force et stabilité. Ces structures renforcent la signalisation qui promeut la différenciation ostéogénique. Prévisiblement, cependant, cet effet est significativement réduit quand les nanotubes deviennent trop grands en diamètre, rendant difficile pour les cellules d'adhérer à la surface [12]. De même, quand la hauteur des nanotubes est incohérente, les différences de hauteur peuvent résulter en un changement de site d'adhésion et un réarrangement du cytosquelette, ce qui affectera davantage la différenciation cellulaire. Intriguant, même les matériaux à surface plate sans modification par nanotubes peuvent induire des changements dans la différenciation cellulaire. Un certain nombre d'études ont démontré que la formation d'adhérence focale et l'organisation des fibres de stress sont régulées par la rigidité du substrat [63-65], et YAP/TAZ joue aussi un rôle important dans ce processus. Par conséquent, il est évident que l'axe intégrines-FA (adhérences focales)-F-actine joue un rôle dans la transduction des signaux physiques en signaux chimiques intracellulaires.
En résumé, nos résultats ont démontré que la F-actine régule la différenciation ostéoblastique des cellules souches mésenchymateuses sur les nanotubes de TiO₂ via MKL1 et YAP/TAZ, dont les gènes cibles expliquent en partie la prolifération et la différenciation des CSM. Nous savons qu'il n'y a pas de changement unique dans le réseau de signaux et tout changement est régulé par de nombreuses molécules et protéines. Un type de comportement biologique doit être le résultat de la régulation d'une série de voies de signalisation. Les nanotubes induisent la différenciation cellulaire en déclenchant un réseau complexe de signaux, incluant les intégrines, les protéines contenues dans les complexes d'adhérence focale, FAK, Src, Rho GTPase, la voie MAPK, la voie Hippo et d'autres voies de signalisation rapportées. Au moins aussi important, il y a de nombreux cycles de signaux dans le réseau de signaux et un signal en aval peut réguler le signal en amont via rétroaction. Dans cette étude, nous avons trouvé que la vinculine et FAK peuvent être régulées en retour par l'assemblage de F-actine, augmentant l'incertitude de la fonction moléculaire. Par conséquent, plus de détails du mécanisme moléculaire attendent une étude plus approfondie.
Conclusions
Nos résultats ont montré que les nanotubes de TiO₂ favorisaient la différenciation ostéogénique des CSM, et cette capacité était améliorée avec l'augmentation du diamètre des nanotubes dans une certaine plage (30-70 V). La F-actine médiait la différenciation cellulaire induite par les nanotubes via MKL1 et YAP/TAZ, fournissant une nouvelle compréhension dans l'étude de la différenciation cellulaire.
Disponibilité des données et matériaux
Les jeux de données utilisés et analysés pendant l'étude actuelle sont disponibles auprès de l'auteur correspondant sur demande raisonnable.
Abréviations
- CSM :
- Cellules souches mésenchymateuses
- MEB :
- Microscopie électronique à balayage
- EDS :
- Analyse par dispersion d'énergie des rayons X
- AFM :
- Microscopie à force atomique
- ALP :
- Phosphatase alcaline
- Cyto D :
- Cytochalasine D
- Jasp :
- Jasplakinolide
- VCL :
- Vinculine
- FAK :
- Kinase d'adhérence focale
- BCA :
- Acide bicinchoninique
- PVDF :
- Polyvinylidène difluorure
- Runx2 :
- Facteur de transcription lié à runt 2
- Osx :
- Osterix
- OCN :
- Ostéocalcine
- YAP :
- Protéine associée à Yes
- MKL1 :
- Leucémie mégacaryoblastique 1
- FBS :
- Sérum fœtal bovin
- MEC :
- Matrice extracellulaire
- MLC :
- Chaîne légère de myosine
- LIMK :
- Kinase LIM
- FH :
- Homologie formine
- GPCR :
- Récepteurs couplés aux protéines G
- MAP2K :
- Kinase de kinase de protéine activée par mitogène
- ERK :
- Kinase régulée par signal extracellulaire
- SRF :
- Facteur de réponse au sérum
- SMA :
- Actine musculaire lisse
- PPARγ :
- Récepteur activé par les proliférateurs de peroxysomes γ
- LATS1/2 :
- Gènes suppresseurs de tumeurs larges 1 et 2
- TBX5 :
- T-box 5
Nanomatériaux
- Marché du dioxyde de titane (TiO₂) – Mise à jour Q1 2021 : prix, approvisionnement et perspectives régionales
- Nanofluides TiO₂ : Partie 1 – Préparation et propriétés clés
- Nanocomplexes hybrides de nanoparticules de terres rares et de cholestérol inhibant les CSCs CD44⁺ dans le carcinome d'Ehrlich, réduisant la croissance tumorale de 75 % et prolongeant la survie
- Nanofluides de TiO₂ : Applications, défis et orientations futures – Partie 2
- L'optimisation du positionnement de nanoparticules d'or dans le TiO₂ améliore l'efficacité des cellules solaires à colorant sensibilisé
- Synthèse hydrothermale contrôlée de nanocristaux ZnO pour cellules solaires polymères inversées à haut rendement
- Optimisation des précurseurs de titane pour couches compactes TiO₂ haute performance dans les cellules solaires pérovskite
- Comment la raideur élastique et l'adhésion de surface régissent le comportement de rebond des nanoparticules
- Optimisation de l'efficacité des cellules solaires pérovskites avec des nanoparticules Ag à taille contrôlée dans une couche compacte TiO₂