



Comment les nanotubes de carbone multi-parois favorisent le développement des racines latérales de tomate via la signalisation par l'oxyde nitrique
Résumé
De nombreuses études ont révélé que les nanotubes de carbone multi-parois (NTCMP) sont toxiques pour les plantes. Cependant, si et comment les NTCMP influencent la formation des racines latérales (RL), composant important de l'adaptabilité du système racinaire aux signaux environnementaux, reste controversé. Dans ce rapport, nous avons trouvé que les NTCMP peuvent pénétrer dans les racines de plantules de tomate. L'administration de NTCMP favorise la formation des RL de tomate de manière approximativement dose-dépendante. La production endogène d'oxyde nitrique (NO) est déclenchée par les NTCMP, confirmée par méthode au réactif de Griess, résonance paramagnétique électronique (RPE) et microscopie confocale à balayage laser (MCBL), conjointement avec le piégeur de NO. Une relation cause-effet existe entre NTCMP et NO dans l'induction du développement des RL, car la synthèse de NO et la formation des RL déclenchées par les NTCMP sont manifestement bloquées par l'élimination du NO endogène avec son piégeur. L'activité de l'enzyme génératrice de NO, la nitrate réductase (NR), est augmentée en réponse aux NTCMP. L'inhibition de la NR par le tungstate altère non seulement la production de NO, mais abolit aussi la formation des RL induite par les NTCMP. L'ajout de Nᴳ-nitro-L-arginine méthyl ester (L-NAME), inhibiteur de l'enzyme de type synthase de l'oxyde nitrique (NOS) mammalien, n'influence pas la formation des RL. Collectivement, nous proposons que le NO pourrait agir comme molécule de signalisation en aval dans le contrôle du développement des RL par les NTCMP, au moins partiellement via la NR.
Introduction
Il existe de nombreuses applications biologiques et biomédicales des nanotubes de carbone [1, 2]. En raison de leur capacité unique à pénétrer facilement les membranes cellulaires, la biosécurité des nanotubes de carbone est toujours un sujet de débat [3, 4]. Parallèlement, comme la production et l'utilisation des nanotubes de carbone croissent rapidement, il devient important de caractériser les mécanismes détaillés de leur cytotoxicité chez l'homme, les mammifères, et récemment chez les plantes [3-9]. Il est bien connu que les plantes et leurs communautés sont très importantes pour l'homme et l'environnement, et qu'elles sont aussi exposées au risque des nanotubes de carbone, par accumulation dans les sols via l'application d'engrais biosolides [6, 10, 11]. En tant que membres importants des nanotubes de carbone, la toxicité des nanotubes de carbone multi-parois (NTCMP), constitués de multiples couches de graphène enroulées, a été largement étudiée. Des études chez les mammifères ont révélé que l'exposition aux NTCMP et nanotubes à paroi unique induit des dommages oxydatifs et l'activation de NF-κB dans kératinocytes humains et cellules A549 [9, 12]. Les NTCMP et nanotubes à paroi unique peuvent fusionner avec la membrane plasmique, causant des dommages cellulaires par peroxydation lipidique et stress oxydatif [9, 11, 13, 14]. Cytotoxicité, stress oxydatif et réponses inflammatoires modérées observés dans cellules endothéliales veineuses ombilicales humaines [15]. Une étude antérieure suggérait que la toxicité primaire des NTCMP dans l'épinard rouge provenait principalement de la surproduction d'espèces réactives de l'oxygène (ROS), effets toxiques réversibles par acide ascorbique supplémenté [7]. En ce sens, les NTCMP sont considérés comme un nouveau facteur de stress pour les organismes, animaux ou plantes.
La formation des racines latérales (RL), déterminant important de l'architecture racinaire, est considérée comme indicateur de réponse adaptative à divers stress [16]. Chez les plantes supérieures, la formation des RL est influencée par les phytohormones et une large gamme de signaux environnementaux : disponibilité en eau, nutriments, stress abiotiques (hypoxie, métaux lourds) [17-19]. De nombreuses preuves confirment que la formation des RL n'agit pas seulement comme support physique, mais contribue aussi à l'absorption d'eau et nutriments pour la croissance et le développement [19-21]. Différents signaux environnementaux peuvent déclencher plusieurs phénotypes de réponse morphogénique induite par stress (RMIS), incluant promotion de la formation des RL et inhibition de l'élongation racinaire [17]. La régulation de la formation des RL est aussi étroitement contrôlée par les phytohormones, comme l'auxine, et l'activation de gènes régulateurs du cycle cellulaire en réponse à l'auxine a été suggérée [19, 22]. Parallèlement, l'implication de certaines petites molécules dans l'organogenèse racinaire induite par l'auxine a été confirmée chez concombre, tomate, soja, colza [23-27]. Ces petites molécules incluent : peroxyde d'hydrogène (H₂O₂), oxyde nitrique (NO), monoxyde de carbone (CO), hydrogène gazeux (H₂).
Parmi celles-ci, le NO, gaz radicalaire libre, a de multiples fonctions physiologiques chez les plantes [28, 29]. Outre l'amélioration de l'adaptation aux stress, le NO favorise le développement des poils absorbants, le bouturage adventif et la formation des RL [30-33], bien que la/les source(s) enzymatique(s) de biosynthèse du NO dans ces processus reste(nt) élusive(s). Chez les animaux, la synthèse de NO à partir de L-arginine est catalysée par l'enzyme hémique synthase de l'oxyde nitrique (NOS) [34]. Bien que le(s) gène(s) codant les enzymes NOS n'aient pas été identifié(s) chez les plantes, l'activité de type NOS mammalien est largement détectée [35, 36], et les inhibiteurs du NOS mammalien, comme le Nᴳ-nitro-L-arginine méthyl ester hydrochloride (L-NAME), peuvent inhiber la génération de NO chez les plantes [25, 33, 36-39]. D'importantes preuves génétiques révèlent que le NO peut être produit par la nitrate réductase (NR), enzyme bien connue responsable du métabolisme de l'azote chez les plantes [28]. L'implication de la production de NO dépendante de la NR dans la fermeture stomatique et l'acclimatation au froid a été démontrée génétiquement [37, 38]. Notre étude précédente a montré que la synthèse de NO dépendante de la NR est impliquée dans la formation des RL médiate par l'hydrogène gazeux induit par l'auxine [39].
Jusqu'à présent, différentes réponses dans la formation des RL (promotion ou inhibition) ont été rapportées chez diverses espèces végétales supplémentées en nanomatériaux, incluant NTCMP [40-43], nanoparticules d'or (Au NP [44]), nanoparticules d'oxyde de zinc (ZnO NP [45, 46]), nanoparticules de dioxyde de titane (TiO₂ NP [46]), oxyde de graphène (GO [47-49]) (tableau 1), et aucune étude n'a encore fourni de preuve définitive d'un rôle du NO dans ces réponses. Dans cette étude, la détection du NO endogène par méthode Griess, MCBL et analyses RPE a révélé que le niveau de NO augmentait dans les plantules de tomate traitées aux NTCMP. Ensuite, la formation des RL a été observée. Nous étudions davantage l'implication du NO dans la formation des RL induite par les NTCMP, en manipulant les niveaux endogènes de NO avec piégeur et antagonistes inhibant NR et activité NOS de type mammalien. Une expérience supplémentaire a révélé que le NO dépendant de la NR pourrait être, au moins partiellement, essentiel pour la formation des RL en réponse aux NTCMP. Ce travail ouvre une nouvelle fenêtre pour comprendre les effets biologiques des nanomatériaux chez les plantes.
Matériaux et méthodes
Produits chimiques
Sauf indication contraire, tous les autres produits chimiques provenaient de Sigma-Aldrich (St Louis, MO, USA). NTCMP, achetés chez Sigma-Aldrich, caractérisés comme décrit antérieurement [50]. Diamètre externe 6-12 nm, interne 2,5-5 nm, longueur 1-9 μm. Après sonication, suspension colloïdale homogène stérilisée et utilisée.
Autres nanoparticules de carbone de Nanjing XFNANO Materials Tech Co., Ltd. : nanotubes carbone mono-paroi (NTCUP, XFS22 ; pureté >95 %, diamètre 1-2 nm, longueur 5-30 μm, surface spécifique >1075 m²/g), graphène (XF001W ; pureté ~99 %, diamètre 0,5-5 μm, épaisseur ~0,8 nm, ratio monocouche ~80 %, surface BET 500-1000 m²/g ; résistivité électrique ≤0,30 Ω·cm), charbon actif (CA, XFP06 ; pureté >95 %, taille particule 5±1 μm, volume pore 1-1,2 cm³/g, ouverture 2,0-2,2 nm, surface spécifique ~1500-1700 m²/g).
Nitroprussiate de sodium (NPS) utilisé comme composé libérant du NO [30-33]. 2-(4-Carboxyphényl)-4,4,5,5-tétraméthylimidazoline-1-oxyl-3-oxide sel potassium (cPTIO) comme piégeur de NO [51-54]. Tungstate (Tg ; inhibiteur NR [28, 33, 37, 55-57]) et Nᴳ-nitro-L-arginine méthyl ester hydrochloride (NAME ; inhibiteur NOS type mammalien [25, 33, 36-39]) appliqués. Concentrations déterminées en expériences pilotes pour observer réponses significatives.
Matériel végétal, conditions de culture et détermination de la formation des RL
Tomate (Solanum lycopersicum L.) graines « Jiangshu 14 » fournies par Instituts Agricoles Jiangsu, Nanjing, Jiangsu, Chine. Graines de taille identique germées eau distillée 25±1 °C obscurité 3 jours. Plantules identiques sélectionnées radicules 2-3 mm transférées dans 6 mL solutions traitement contenant concentrations indiquées NTCMP, 200 nM acide 1-naphtylacétique (ANA ; auxine connue), 0,1 mM NPS, 0,2 mM cPTIO, 20 μM tungstate (Tg), 0,2 mM NAME, autres nanoparticules carbone (5 mg/mL NTCUP, graphène, CA), seules ou combinées pour temps indiqués. Plantules cultivées incubateur éclairé (25±1 °C) intensité lumineuse 200 μmol m⁻² s⁻¹ photopériode 14/10 h (jour/nuit).
Après traitements, photos prises, nombre et longueur RL émergées (>1 mm) par plantule déterminés logiciel Image J (https://rsb.info.nih.gov/ij/) [39, 58]. Seuls segments inductibles RL utilisés pour analyses subséquentes.
Imagerie distribution NTCMP par microscopie électronique à transmission
Distribution NTCMP dans racine plantule tomate caractérisée MET (JEOL, JEM-200CX, Tokyo, Japon). Préparation échantillons MET selon protocole antérieur [59].
Imagerie NO endogène par microscope confocal à balayage laser
Imagerie NO sonde fluorescente NO-spécifique perméable cellules 4-amino-5-méthylamino-2′,7′-difluorofluorescéine diacétate (DAF-FM DA). Après lavage sonde, images obtenues microscope Zeiss LSM 710 confocal (Carl Zeiss, Oberkochen, Allemagne, excitation 488 nm, émission 500-530 nm analyse NO). 20 échantillons individuels sélectionnés aléatoirement mesurés par traitement. Photos représentatives résultats identiques.
Teneur NO déterminée par essai réactif Griess
Selon méthodes décrites [50], teneur NO déterminée essai réactif Griess. Important : pour échapper interférence nitrates/nitrites concentrés plantes, échantillons identiques pré-incubés 200 μM cPTIO (piégeur NO) 30 min = échantillons blancs. Après ajout réactif Griess 30 min, absorbance 540 nm, teneur NO déterminée par comparaison courbe étalon NaNO₂.
Détermination NO par résonance paramagnétique électronique (RPE)
Selon méthodes antérieures [39, 55, 60], détermination niveau NO par RPE. Couche solvant organique utilisée pour déterminer NO spectromètre Bruker A300 (Bruker Instrument, Karlsruhe, Allemagne) conditions : température ambiante ; fréquence micro-ondes 9,85 GHz ; puissance micro-ondes 63,49 mW ; fréquence modulation 100,00 kHz.
Détermination activité nitrate réductase (NR)
Activité NR détectée spectrophotométriquement 540 nm selon méthode antérieure [57]. Nitrite produit déterminé spectrophotométriquement 540 nm par ajout 1 mL sulfenilamide 1 % (p/v) dans HCl 3 M avec 1 mL n-(1-naphtyl)-éthylènediamine 0,02 % (v/v).
Analyse statistique
Résultats exprimés moyennes ± EM de 3 expériences indépendantes avec 3 répétitions biologiques chacune. Analyse statistique logiciel SPSS Statistics 17.0. Test multiple Duncan (p<0,05) choisi.
Résultats
Les NTCMP non seulement entrent dans les cellules racinaires, mais favorisent aussi la formation des RL
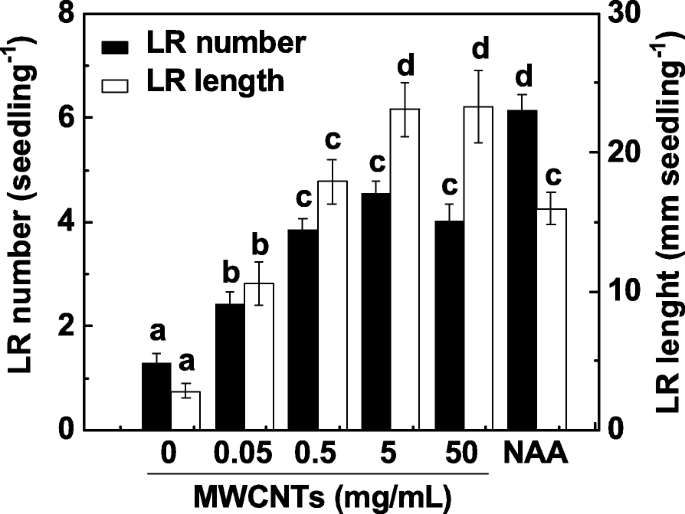
La formation des RL est un déterminant majeur de l'architecture du système racinaire. Pour étudier l'effet des NTCMP sur la formation des RL, plantules tomate 3 jours incubées avec gamme concentrations NTCMP (0,05, 0,5, 5, 50 mg/mL) 3 jours. Application ANA 200 nM = contrôle positif. Expérience : nombre et longueur RL déterminés comme deux paramètres formation RL. Figure 1 : comparé témoins, NTCMP exogènes induisent significativement formation RL manière approximativement dose-dépendante, effet maximal 5 et 50 mg/mL. Réponse inductive similaire observée 200 nM ANA. Considérant coût NTCMP et réponse induction RL, 5 mg/mL NTCMP appliqué expériences suivantes.
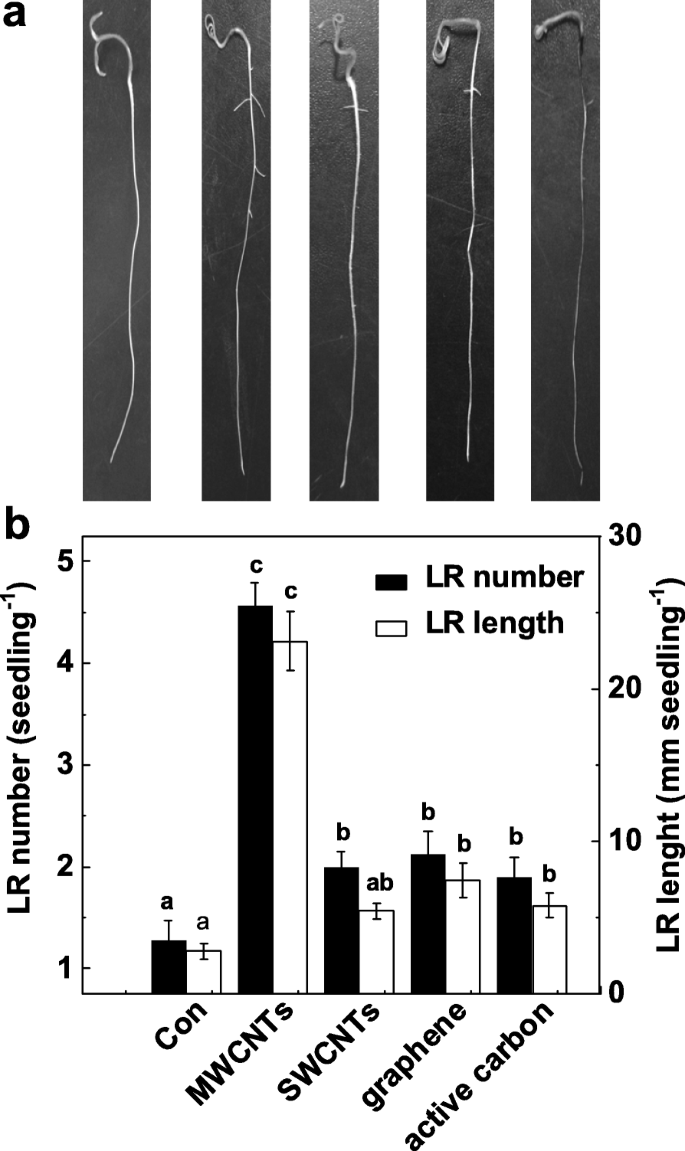
Pour valider fonction spécifique NTCMP induction RL, nous étudions si autres allotropies NTCMP ont effets inductifs. Figure 2a : tous nanomatériaux carbone effets toxiques croissance tige (données non montrées). Intéressant, application NTCMP, NTCUP, graphène, CA concentration identique (5 mg/mL) résultent différemment en augmentations nombre/longueur RL vs témoins sans chimique (figure 2b). Réponse inductive maximale découverte plantules tomate incubées NTCMP.
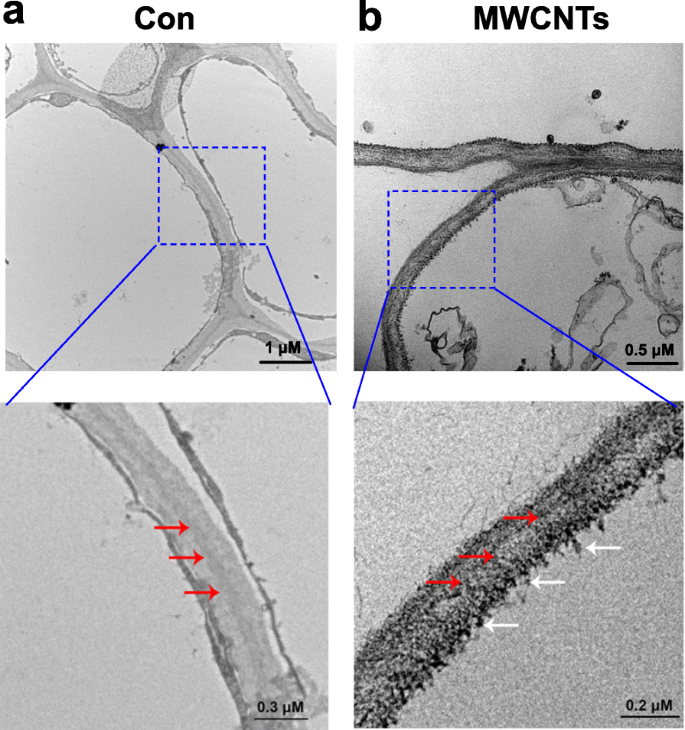
Par MET, distribution NTCMP évaluée facilement. Figure 3 : NTCMP appliqués exogènement absorbés plantules tomate, distribution NTCMP dans cellules racinaires. Compréhensible car racines plantules directement cultivées solution liquide contenant NTCMP.
La synthèse de NO induite par NTCMP et la formation subséquente des RL sont sensibles au cPTIO, piégeur de NO
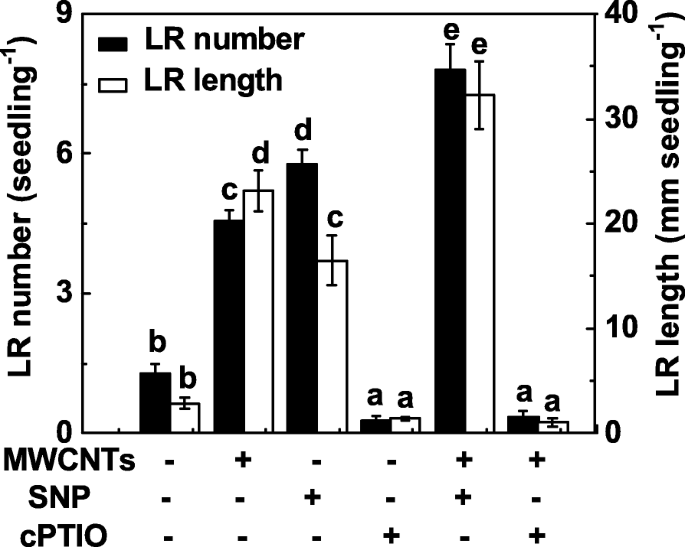
Pour investiguer si NO impliqué dans formation RL induite NTCMP, fonction NO dans formation RL elicitée NTCMP évaluée manipulant niveaux endogènes NO composé libérant NO et piégeur. Similaire résultats antérieurs [31], administration nitroprussiate sodium (NPS) → induction formation RL, réponse additive observée NPS+NTCMP ensemble (figure 4). Ajout cPTIO (piégeur NO) : réponses promotion formation RL causées NTCMP significativement altérées. Seul, cPTIO inhibe développement RL vs témoins sans chimique, indiquant rôle important NO endogène organogenèse racinaire.
Pour évaluer rôle important NO endogène réponse NTCMP, cinétique production NO in vivo détectée méthode réactif Griess. Détermination : filtrat identique prétraité cPTIO = blanc pour résultats précis. Observé : production NO racines plantules tomate augmentée dramatiquement jusqu'à 24 h post-traitement NTCMP puis récupère niveaux initiaux (48 h ; figure 5a). Niveau maximal NO endogène déclenché NTCMP 24 h manifestement aboli cPTIO, suggérant rôle spécifique NO.
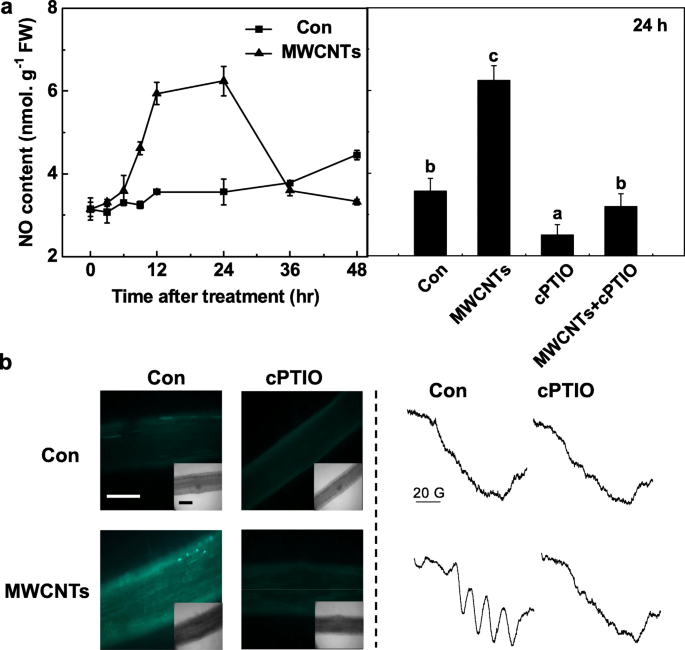
Pour confirmer, LSCM et RPE adoptés. Premièrement, changements niveaux NO endogènes racines plantules tomate surveillés étiquetage NO sonde fluorescente DAF-FM DA perméable cellules spécifique NO et imagerie LSCM. Similaire résultats (figure 5a), présence cPTIO : intensité fluorescence DAF-FM déclenchée NTCMP grandement abolie (figure 5b). Résultats impliquent fluorescence DAF-FM liée niveaux NO endogènes racines plantules tomate.
Production NO induite NTCMP confirmée spectroscopie RPE. Attendu : racines plantules traitées 24 h NTCMP présentent structure triplet hyperfine typique complexe NO. Ajout cPTIO abolit signal, indiquant exposition NTCMP → forte production NO (figure 5b). Collectivement, données suggèrent synthèse NO requise pour formation RL déclenchée NTCMP plantules tomate.
La NR pourrait être responsable de la production de NO induite par les NTCMP et de la formation subséquente des RL
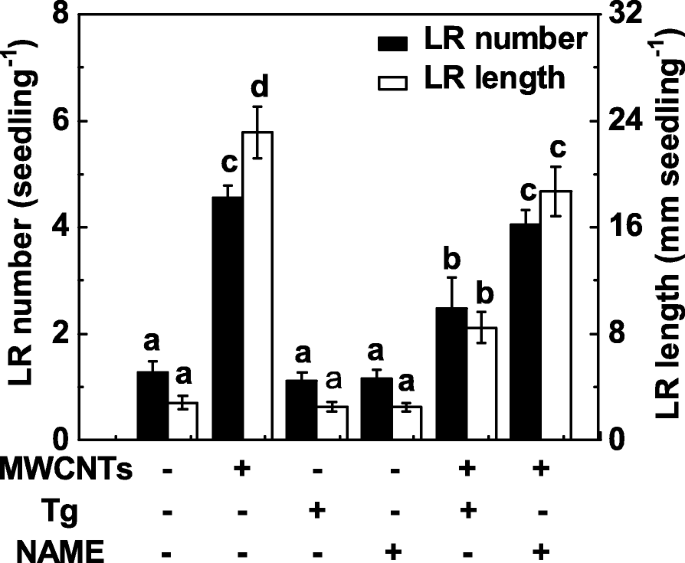
NR et NOS type mammalien deux enzymes majeures synthèse NO plantes, tungstate (inhibiteur NR) et NAME (inhibiteur NOS mammalien) appliqués expériences subséquentes. Figure 6 : traitement tungstate supprime substantiellement promotion formation RL racines plantules tomate traitées NTCMP. Comparativement, induction formation RL NTCMP pas fortement inhibée ajout NAME, indiquant NOS type mammalien pourrait ne pas être enzyme cible synthèse NO responsable production NO elicitée NTCMP. Légère diminution non significative formation RL observée plantules tomate tungstate ou NAME seuls.
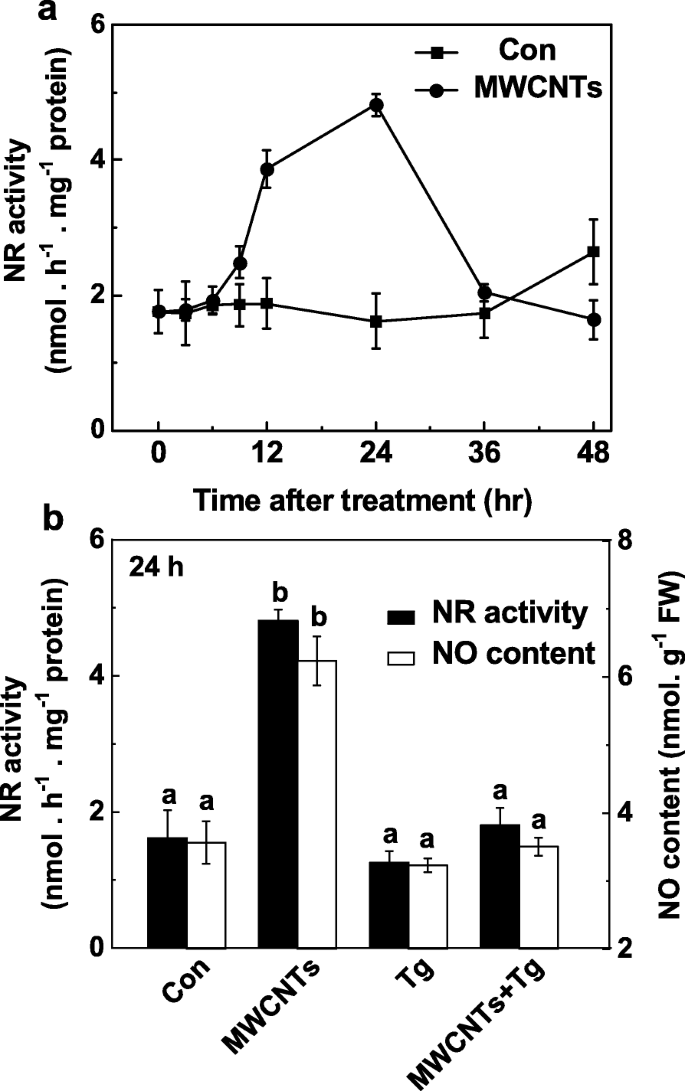
Rôle NR dans formation RL déclenchée NTCMP examiné surveillant production NO réponse NTCMP appliqués avec/sans tungstate. Comparé changements production NO endogène (figure 5a), analyse cinétique activité NR tendance similaire (figure 7a), pic aussi 24 h post-traitement NTCMP. Résultats suggèrent augmentation production NO induite NTCMP résulte principalement activité NR augmentée. Cohérent, inhibition production NO dépendante NR par tungstate confirmée méthode Griess (figure 7b), LSCM, RPE (fichier supplémentaire 1: Figure S1).
Discussion
La phytotoxicité est considération significative pour comprendre impact environnemental potentiel nanoparticules [4, 7, 61-63]. Preuves abondantes : NTCMP toxiques plantes, incluant dommages oxydatifs, inhibition germination, croissance, développement racinaires [11, 63, 64]. Cependant, comme phénotype RMIS, ramification racinaire par formation RL composant important adaptabilité système racinaire signaux environnementaux [17]. Ce travail intègre analyses biologique, pharmacologique, biochimique pour montrer implication production NO dépendante NR dans formation RL induite NTCMP, au moins partiellement nos conditions expérimentales. Fonction NO organogenèse racinaire stimulée NTCMP souligne rôles centraux ce second messager impliqué processus développemental plantes et adaptation stress [29, 30-33, 37, 38].
Premièrement, confirmé 5 mg/mL NTCMP (DE 6-12 nm) entrent tissus racinaires (figure 3). Ensuite, induction formation RL tomate observée (figure 1), mimant rôles induction ANA et NPS (figure 4), composé libérant NO connu [30, 31]. Réponses inductives similaires découvertes arbres résineux [41], laitue [42], Arabidopsis [43] défiés NTCMP (DE 6-13 nm, ~9,5 nm, 30-40 nm). Ex: application NTCMP pristine (p-NTCMP) ou carboxyl-fonctionnalisé (c-NTCMP) (diamètre moyen 9,5 nm) → promotion développement RL plantules laitue [42]. Par contraste, inhibition racine primaire et même RL trouvées simultanément plantes soja soumises NTCMP (DE 20-70 nm [40]). Comparant données diamètre externe NTCMP (tableau 1), nous supposons effets NTCMP formation RL varient avec diamètres : promotion diamètre faible, inhibition diamètre élevé. Mécanisme lié à investiguer soigneusement. Phénomène similaire confirmé tolérance salinité plantes [50]. Combiné résultats, déduit fonction nanomatériaux peut varier espèces, vice versa, différents nanomatériaux → divers effets biologiques. Autres facteurs influents : doses différentes NTCMP [48], conditions culture plantes, pas facilement exclus.
Comparé autres nanomatériaux (NTCUP, graphène, CA concentration identique), induction maximale formation RL et effets toxiques croissance tige observés NTCMP (figure 2). Lié caractéristiques physiques spéciales NTCMP : haute conductivité électrique, grande surface spécifique, rapport d'aspect élevé, stabilité thermique remarquable [65]. Effets toxiques nanomatériaux largement rapportés concombre, chou, carotte, oignon etc. [66, 67].
Preuves abondantes : NO, molécule signalisation, régule large gamme processus plantes adaptation environnementale à développement (germination graines, organogenèse racinaire) [29, 68-73]. Expérience subséquente : NO impliqué formation RL induite NTCMP. Bien que plusieurs méthodes imagerie production NO cellules plantes appliquées, inconvénients : manque sensibilité, interférence molécules indépendantes NO, existent chaque méthode [74]. Ainsi, trois méthodes imagerie/détermination NO : méthode Griess, LSCM, RPE, avec application cPTIO piégeur NO, appliquées nos conditions. Trois méthodes : production NO endogène augmentée NTCMP plantules tomate abolie cPTIO (figure 5) [30-32]. Important : ce processus corrélé réponse biologique formation RL induite NTCMP, sévèrement bloquée cPTIO appliqué simultanément (figure 4).
Évaluation supplémentaire réponses et source(s) potentielle(s) NO induite NTCMP exogènes : production NO et formation RL subséquente attribuables activité NR. Plantes : production NO principalement NR et protéine NOS type mammalien [28]. Gène NOS plante pas identifié [35, 75, 76], bien que expériences inhibiteurs enzyme NOS mammalien apportent preuves voie L-arginine-dépendante production NO [36, 76]. NR confirmée source NO la plus importante plantes [28]. Études antérieures : production NO dépendante NR fonctionne signal nitrate-lié impliqué régulation architecture racinaire [32, 33]. Aussi, production NO dépendante NR associée acclimatation froid [38], tolérance salinité [50], fermeture stomatique induite acide abscissique [77]. Nos résultats : tungstate (inhibiteur NR) altère manifestement formation RL induite NTCMP, surtout longueur RL (figure 6). Par contraste, légère diminution longueur RL, pas différence significative nombre RL avec L-NAME (inhibiteur NOS mammalien). Cohérent, essai biochimique : activité NR augmentée manifestement NTCMP (figure 7a), parallèlement changements production NO (figure 5a). Réponses totalement bloquées tungstate (figure 7a, fichier supplémentaire 1: Figure S1). Déduction : production NO endogène augmentée induite NTCMP principalement attribuée voie NR. Preuves génétiques supplémentaires nécessaires.
Conclusion
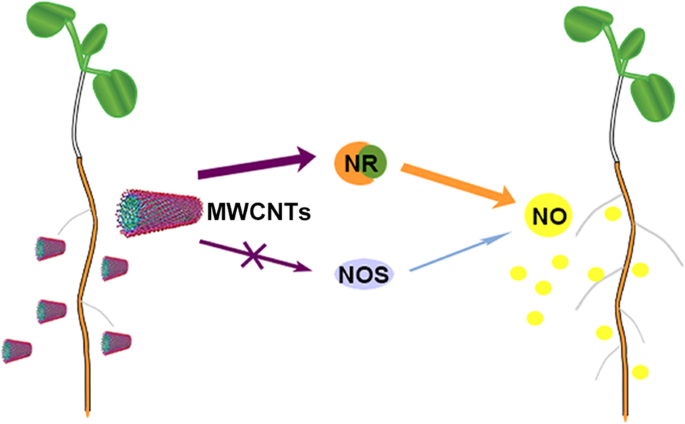
En résumé, nous apportons preuves que la production de NO induite par les NTCMP via la NR pourrait être requise pour la formation des racines latérales de tomate, résumée figure 8. Important : ces résultats donnent aperçu mécanisme moléculaire complexe fonctions NTCMP plantes.
Disponibilité des données et matériaux
Toutes les données pleinement disponibles sans restriction.
Abréviations
- CO :
- Monoxyde de carbone
- cPTIO :
- 2-(4-Carboxyphényl)-4,4,5,5-tétraméthylimidazoline-1-oxyl-3-oxide sel potassium
- DAF-FM DA :
- 4-Amino-5-méthylamino-2′,7′-difluorofluorescéine diacétate
- RPE :
- Résonance paramagnétique électronique
- GO :
- Oxyde de graphène
- H₂ :
- Hydrogène gazeux
- H₂O₂ :
- Peroxyde d'hydrogène
- L-NAME :
- Nᴳ-Nitro-L-arginine méthyl ester
- RL :
- Racine latérale
- MCBL :
- Microscopie confocale à balayage laser
- NTCMP :
- Nanotubes de carbone multi-parois
- ANA :
- Acide 1-naphtylacétique
- NO :
- Oxyde nitrique
- NOS :
- Synthase de l'oxyde nitrique
- NR :
- Nitrate réductase
- ROS :
- Espèces réactives de l'oxygène
- RMIS :
- Réponse morphogénique induite par stress
- NPS :
- Nitroprussiate de sodium
- NTCUP :
- Nanotubes de carbone mono-paroi
- MET :
- Microscopie électronique à transmission
- Tg :
- Tungstate
Nanomatériaux
- Les nanotubes de carbone offrent une flexibilité et une vitesse record dans l'électronique
- Visualisation du carbone dissous océanique à l'échelle atomique
- Prothèses en fibre de carbone : Comment les matériaux haute performance transforment le remplacement des membres
- Oxycarbonitrate de bore : Un nouveau photocatalyseur sans métal avec production d'hydrogène solaire améliorée et dégradation de colorants
- Analyse atomique et électronique complète des nanofibres de carbone à coupelles empilées
- Électrodes de carbone vitreux modifiées par nanoparticules Au assistées par lumière visible pour détection sensible de l'acide urique
- Système micellaire vermiforme renforcé par nanoparticules : conception, rhéologie et insights mécanistiques
- Échafaudages nHAC/PLGA intégrant de l'oxyde de graphène favorisent la prolifération d'ostéoblastes et la régénération osseuse
- Analyse Comparative des Propriétés Électrochimiques, Biomédicales et Thermiques de Nanomatériaux Naturels vs Synthétiques