



La ferumoxytol réduit l'activité des CSM pour atténuer l'immunosuppression induite par le LPS dans la septicémie
Résumé
L'immunosuppression induite par la septicémie est reconnue comme l'une des principales caractéristiques responsables des échecs thérapeutiques. Les cellules suppresseurs dérivées de la lignée myéloïde (CSM), principalement caractérisées par leurs propriétés immunosuppressives, ont été signalées comme étant expandues dans la septicémie. La ferumoxytol (FMT), un supplément de fer approuvé par la FDA, a démontré des propriétés immunomodulatrices dans les tumeurs. Cependant, il reste incertain si la FMT modifie les fonctions des CSM pour réduire l'immunosuppression du stade tardif de la septicémie. Ici, nous avons montré un effet immunomodulateur de la FMT sur les CSM pour améliorer l'immunosuppression induite par le lipopolysaccharide (LPS) au stade tardif de la septicémie. La séparation des cellules ayant internalisé la FMT et la détection du contenu intracellulaire en fer ont montré que les CSM pouvaient absorber la FMT. De faibles doses de FMT n'avaient pas d'effet sur la viabilité cellulaire des CSM, mais la FMT inhibait l'expansion des CSM in vitro. De plus, la FMT diminuait significativement les niveaux d'expression de l'Arg-1, S100A8, S100A9 et p47phox ainsi que la production de ROS dans les CSM. La FMT réduisait le pourcentage de CSM granulocytaires (G-CSM) et favorisait la différenciation des CSM en macrophages. En outre, la FMT diminuait le recrutement des globules blancs et l'épaississement de la paroi alvéolaire dans les poumons et les zones de nécrose dans le foie ainsi que certains marqueurs biochimiques de dysfonction hépatique. La FMT réduisait le pourcentage de G-CSM et de CSM monocytaires (M-CSM) dans la rate de souris septiques induites par le LPS. Notamment, la FMT réduisait les fonctions immunosuppressives des cellules T des G-CSM et M-CSM. Attendu, la FMT réduisait également significativement l'expression des gènes Arg-1 et p47phox dans les cellules CD11b⁺Gr-1⁺ spléniques isolées de souris traitées au LPS. Ces données indiquent que la FMT diminue les fonctions immunosuppressives des CSM en diminuant la production d'Arg-1 et de ROS, suggérant que la FMT pourrait réduire l'immunosuppression à long terme au stade tardif de la septicémie.
Introduction
La FMT, un supplément de fer approuvé par la Food and Drug Administration, a été utilisée pour traiter l'anémie ferriprive chez les adultes atteints de maladie rénale chronique (MRC) [1], et la FMT est également largement utilisée comme agent de contraste et vecteur de médicaments [2]. Des études précédentes ont montré que la FMT possédait des propriétés immunomodulatrices, telles que sa capacité à induire un changement phénotypique des macrophages M2 vers un sous-type M1 macrophage à haute expression de CD86⁺ et TNF-α positif [3, 4]. Cependant, les effets de la FMT sur d'autres cellules immunitaires n'ont pas été examinés.
Les CSM sont une population hétérogène de cellules myéloïdes immatures avec une puissante capacité immunosuppressive [5]. Chez la souris, les CSM sont identifiables comme des cellules Gr-1⁺CD11b⁺, tandis que les CSM humains n'ont pas l'homologue Gr-1 et sont définis comme des cellules CD14⁻HLA-DR⁻CD11b⁺CD33⁺ ou CD14⁺HLA-DR⁻CD11b⁺CD33⁺ [6]. Les CSM consistent en deux grands groupes de cellules, les CSM granulocytaires ou PMN-CSM et les M-CSM, et les deux populations ont des fonctions immunosuppressives par la production d'iNOS, de ROS et d'Arg-1. L'activité accrue de l'Arg-1 épuise la L-arginine, et la pénurie de L-arginine inhibe la prolifération des cellules T en diminuant l'expression de la chaîne zeta du CD3. L'iNOS génère du NO, qui inhibe les fonctions de JAK3 et STAT6 dans les cellules T, ainsi que l'expression du MHC II. Les ROS induisent la modification post-traductionnelle des récepteurs des cellules T et peuvent causer l'absence de réponse des cellules T spécifiques à l'antigène [7]. Les M-CSM proviennent de précurseurs monocytes et peuvent se différencier en macrophages et cellules dendritiques sous des conditions cytokiniques appropriées. La plupart de nos connaissances sur les CSM proviennent d'études sur le cancer. Ces dernières années, une expansion des CSM a également été décrite dans les maladies inflammatoires aiguës et chroniques, y compris l'inflammation, les brûlures et les maladies auto-immunes [8, 9]. Récemment, une forte absorption de nanoparticules fluorescentes par les CSM dans l'œsophage et la rate de souris a été rapportée dans des études d'imagerie [10]. Cependant, il reste incertain si la FMT modifie la fonction des CSM impliquées dans le développement des maladies inflammatoires.
La septicémie, une réponse inflammatoire hôte dysrégulée à une infection sévère pouvant causer une dysfonction organique potentiellement mortelle, est la cause la plus fréquente de décès en unité de soins intensifs. La septicémie initie une réponse pro-inflammatoire accablante qui, si elle n'est pas traitée tôt, se transforme rapidement en immunosuppression à long terme. L'expansion des CSM a été décrite dans les rates et ganglions lymphatiques dans des modèles animaux septiques [8, 11], ainsi que chez des patients atteints de septicémie [12,13,14]. L'activation de cellules immunosuppressives telles que les CSM est critique pour le contrôle approprié de l'hyperréactivité du système immunitaire inné, mais leur expansion excessive peut mener à une hyperimmunosuppression, qui est la force motrice prédominante pour l'infection secondaire et la mortalité dans la septicémie tardive. L'augmentation du nombre de CSM corrèle avec la suppression de la prolifération des lymphocytes. Il a été rapporté que les CSM acquièrent leur phénotype dans la moelle osseuse puis migrent vers les organes lymphoïdes secondaires pour inhiber les réponses des cellules T et supprimer leur prolifération chez des souris immunosupprimées par le LPS [8]. La plupart des patients avec une septicémie prolongée présentent un statut immunosuppressif, et la plupart de la mortalité par septicémie est due à l'immunosuppression du stade tardif. L'élimination des CSM pourrait avoir des effets bénéfiques dans la septicémie tardive en restaurant la réponse immunitaire [15]. Par conséquent, nous avons émis l'hypothèse que la FMT pourrait moduler les fonctions des CSM pour réduire l'immunosuppression du stade tardif de la septicémie.
Ici, nous avons montré un effet immunomodulateur de la FMT sur les CSM. Nous avons utilisé les propriétés magnétiques de la FMT pour révéler que les CSM étaient capables de phagocyter la FMT in vitro. De plus, nous avons trouvé que la FMT atténuait la fonction immunosuppressives des CSM via la régulation négative de l'Arg-1 et des ROS. En outre, des expériences in vivo ont confirmé que la FMT améliorait le stade tardif de la septicémie induite par le LPS chez la souris en affaiblissant la capacité des CSM à inhiber les cellules T. Nos données suggèrent que la fonction immunomodulatrice de la FMT pourrait être utilisée pour traiter l'immunosuppression qui survient dans la septicémie tardive.
Matériaux et méthodes
Souris
Des souris mâles C57BL/6 (8-10 semaines) ont été achetées au Centre de recherche sur les animaux modèles de l'Université de Nankin (Nankin, Chine). Les souris étaient élevées sous conditions exemptes de pathogènes spécifiques (SPF) sur un cycle lumière/obscurité de 24 h avec un accès libre à la nourriture et à l'eau. Toutes les expériences sur les souris ont été approuvées par le Comité d'éthique pour l'expérimentation animale de l'Université de Nankin.
Coloration de bleu de Prusse
La distribution intracellulaire de la FMT a été détectée en utilisant le kit de coloration de bleu de Prusse de Perl (Solarbio, Chine) selon les instructions du fabricant. Brièvement, les cellules étaient fixées dans 4% de paraformaldéhyde pendant 15 min, puis incubées avec 10% de ferrocyanure de potassium pendant 25-30 min, suivies de lavage et de contre-coloration avec du rouge nucléaire rapide pendant 10 min. Les cellules contenant des particules bleues dans le cytoplasme étaient positives pour la coloration de bleu de Prusse.
Génération de CSM dérivées de la moelle osseuse
Les cellules de moelle osseuse étaient obtenues par lavage des fémurs et tibias de souris sauvages suivi de lyse des globules rouges. Les cellules de moelle osseuse étaient cultivées dans un milieu RPMI-1640 complet avec 10% de FBS, 1% v/v pénicilline et streptomycine (Gibco, CA), 40 ng/mL de facteur stimulant les colonies de granulocytes-macrophages (GM-CSF) (Miltenyi Biotech, Allemagne) et 40 ng/mL d'IL-6 (Miltenyi Biotech, Allemagne) à 37 °C dans un incubateur à 5% CO₂ pendant 4 jours. Les cellules non adhérentes étaient collectées pour les expériences ultérieures.
Test de viabilité cellulaire
La viabilité cellulaire était analysée en utilisant le kit de comptage cellulaire-8 (Dojindo, Kumamoto, Japon) selon les instructions du fabricant. Brièvement, les CSM (5 × 10³) étaient ensemencées dans des plaques de culture à 96 puits et incubées dans une atmosphère à 5% CO₂ à 37 °C avant le traitement. Le milieu était ensuite remplacé par un milieu frais contenant diverses concentrations de FMT (250, 500, 1000, 2000 μg/mL) pendant 24 h. Le surnageant était ensuite éliminé et un milieu frais contenant la solution CCK-8 était ajouté. Après incubation à 37 °C pendant 3 h, l'absorbance était mesurée à 450 nm en utilisant un lecteur de microplaques Gen5 (BioTek, USA).
Isolation de l'ARN total et PCR en temps réel
L'ARN total était extrait des cellules en utilisant le réactif TRIzol (Invitrogen, USA) et quantifié avec un spectrophotomètre Nanodrop (Thermo Scientific, USA) avant d'être transcrit en inverse en utilisant le kit de synthèse de cDNA HiScript II 1st strand (Vazyme Biotech Co., Ltd, Chine) selon les instructions du fabricant. La PCR quantitative en temps réel était réalisée en utilisant le kit PCR SYBR Green (Bio-Rad, Hercules, CA) sur un système qPCR en temps réel StepOne-Plus Applied Biosystems (Applied Biosystems, Forster City, CA). L'expression des gènes était normalisée par rapport à GAPDH en utilisant la méthode 2−ΔΔCt. Les séquences des amorces sont listées dans le Fichier supplémentaire 1 : Tableau S1.
Cytométrie de flux
Les tissus étaient préparés en suspensions monocellulaires avec de la collagenase type D (1 mg/mL) et DNase I (0,1 mg/mL) dans la solution de sel équilibrée de Hank (HBSS) à 37 °C pendant 30 min, puis les globules rouges de la rate étaient lysés. Les suspensions cellulaires étaient filtrées à travers des filtres cellulaires de 70 μm, et les lymphocytes étaient collectés par centrifugation à 300 g pendant 5 min à 4 °C. Après lavage, les cellules étaient immédiatement préparées pour le tri cellulaire activé par fluorescence. Les cellules uniques étaient incubées avec un réactif de blocage FcR (Miltenyi Biotech, Allemagne) pendant 10 min, suivies de coloration avec les conjugués d'anticorps suivants pendant 20 min : anti-CD11b FITC, anti-CD11c, anti-CD4 et anti-CD8 ; anti-Ly6G PE ; anti-Ly6C APC, anti-CD3, anti-F4/80 et anti-MHC II (BioLegend, CA). Après lavage, les cellules étaient détectées avec un FACS Calibur (BD, CA) et les données étaient analysées avec FlowJo 7.6 (Tree Star, Inc., USA).
Coloration H&E
Les tissus du foie et des poumons étaient fixés dans du formaldéhyde phosphate-tamponné à 4%. Le tissu fixé était inclus dans la paraffine, et des sections de 5 μm d'épaisseur étaient colorées avec l'hématoxyline et l'éosine pour la microscopie optique.
Dosage immunoenzymatique (ELISA)
Les taux sériques de TNFα, MCP-1 et IL-1β étaient déterminés en utilisant des kits ELISA spécifiques (Dakewe, Chine) selon les instructions du fabricant. Chaque échantillon était exécuté en double.
Détection des ROS
Les ROS intracellulaires étaient mesurés en utilisant le kit 2,7-dichlorodihydrofluorescéine diacétate (DCFH-DA) (Beyotime, Chine) selon les instructions du fabricant. Brièvement, les cellules étaient lavées deux fois avec du PBS et incubées avec 5 μM DCFH-DA à 37 °C dans l'obscurité pendant 30 min, puis lavées avec du milieu RPMI-1640 et resuspendues dans du PBS. Les cellules étaient analysées pour la fluorescence verte intracellulaire en utilisant un cytomètre de flux (BD, CA).
Test de prolifération des cellules T
Les cellules T CD3⁺ totales étaient enrichies des rates de souris sauvages en utilisant un kit MicroBead CD3ε (Miltenyi Biotech, Allemagne) et incubées avec la coloration CFSE (Invitrogen, USA). Pour la prolifération des cellules T induite par les anticorps anti-CD3/CD28, les cellules T étaient activées avec l'anticorps anti-CD3 (1 μg/mL) et l'anticorps anti-CD28 (1 μg/mL). Les G-CSM (Gr-1highLy-6G⁺) et M-CSM (Gr-1dimLy-6G⁻) isolés des rates de souris traitées par FMT ou véhicule en utilisant un kit d'isolation de cellules suppresseurs dérivées de la lignée myéloïde (Miltenyi Biotech, Allemagne) selon les instructions du fabricant. Les CSM étaient co-cultivées à un ratio 1:1 avec des cellules T CD3⁺ marquées au CFSE dans des plaques à fond plat à 96 puits pendant 3 jours. Le CFSE est divisé équitablement entre les cellules filles à chaque division ; par conséquent, la prolifération était déterminée par cytométrie de flux. La pureté des cellules après tri était > 90%.
Statistiques et analyse des données
Toutes les statistiques étaient calculées en utilisant le logiciel GraphPad Prism 6 (GraphPad Software, CA) et sont présentées comme moyennes ± écarts-types (ET). Les différences entre deux groupes étaient analysées par le test de Mann-Whitney U ou le test de Student bilatéral non apparié. L'ANOVA à un facteur était utilisée pour la comparaison de groupes multiples. Toutes les expériences étaient répétées au moins trois fois. Les différences avec des valeurs p < 0,05 étaient considérées comme statistiquement significatives.
Résultats
Un grand nombre de CSM absorbent la FMT
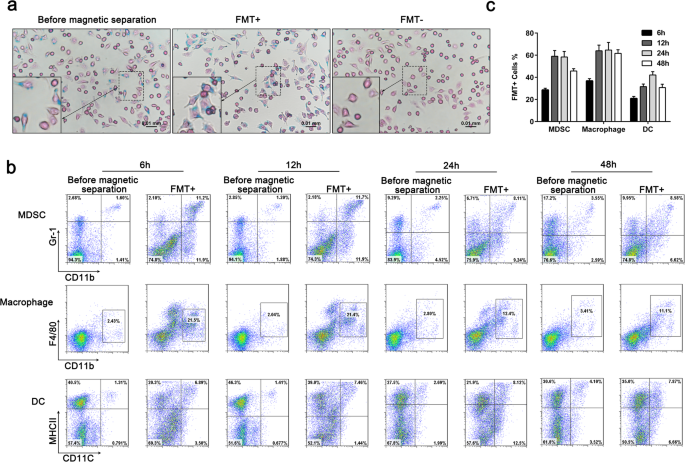
Pour vérifier si les cellules avec FMT internalisée sont séparées par les MicroBilles MACS, nous avons utilisé la coloration de bleu de Prusse pour détecter le contenu intracellulaire en fer dans les macrophages traités avec la FMT (1000 ng/mL) pendant 24 h. Les cellules étaient divisées en trois groupes : avant séparation magnétique, cellules positives pour la FMT sélectionnées magnétiquement (FMT+), et celles qui n'étaient pas isolées magnétiquement (FMT-). La coloration de bleu de Prusse a démontré que la majorité des cellules sélectionnées magnétiquement étaient positives au bleu de Prusse (Fig. 1a). Pour comparer la capacité à phagocyter la FMT entre les CSM, macrophages et cellules dendritiques, nous avons isolé des splénocytes de souris C57BL/6 naïves traitées avec la FMT pendant 6 h, 12 h, 24 h et 48 h. Les splénocytes étaient divisés en deux sous-ensembles : avant séparation magnétique et cellules positives pour la FMT. L'analyse cytométrique a révélé que près de 60% des CSM et plus de 60% des macrophages accumulaient la FMT après 12-48 h (Fig. 1b, c). Seulement environ 40% des cellules dendritiques étaient positives pour la FMT à 24 h. Ces données montraient que, comme les macrophages, les CSM peuvent absorber la FMT et suggéraient que la FMT pourrait influencer la fonction des CSM.
La FMT inhibe l'expansion des CSM in vitro
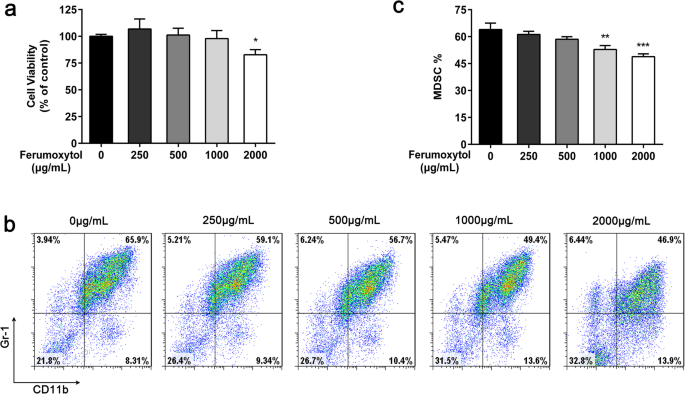
Il a été rapporté que la FMT induit un changement phénotypique des macrophages M2 vers un sous-type M1 macrophage à haute expression de CD86⁺ et TNF-α positif [3]. Puisqu'il y a un grand nombre de CSM qui peuvent absorber la FMT, nous avons émis l'hypothèse que la FMT pourrait altérer la fonction des CSM. Premièrement, les effets cytotoxiques de la FMT à 250, 500, 1000 et 2000 μg/mL sur les CSM ont été évalués par le test de viabilité cellulaire CCK8. Les résultats ont montré que la FMT n'avait pas d'effet sur la viabilité cellulaire à faibles doses et n'exhibait qu'une cytotoxicité modérée à la dose maximale de 2000 μg/mL (Fig. 2a). Nous avons ensuite testé si la FMT à différentes concentrations affecterait la génération des CSM. Les cellules de moelle osseuse isolées de souris C57BL/6 naïves étaient traitées avec du milieu ou diverses concentrations de FMT (250, 500, 1000 et 2000 μg/mL) pendant 4 jours, suivies d'une caractérisation par cytométrie de flux au jour 4. Le GM-CSF et l'IL-6 étaient ajoutés au jour 0. Les résultats de trois expériences indépendantes ont révélé que la FMT à 1000 et 2000 μg/mL diminuait significativement l'expansion des CSM (Fig. 2b, c).
La FMT réduit la capacité immunosuppressives des CSM
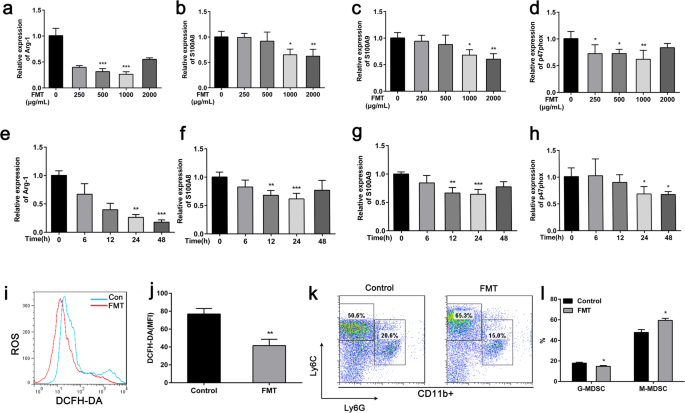
Les CSM utilisent plusieurs mécanismes pour inhiber la prolifération et la fonction effectrice des cellules T, les mieux décrits étant la production de ROS et d'Arg-1. L'expression du composant p47phox du complexe nicotinamide adénine dinucléotide phosphate-oxydase (NOX) est responsable de la production de ROS dans les CSM [5]. Il a été rapporté que S100A8/A9 est synthétisé et sécrété par les CSM dans une boucle inflammatoire autocrine et que cela est important dans la suppression de la fonction des cellules dendritiques dans les modèles murins [16]. Pour déterminer si la FMT pouvait altérer la fonction des CSM, nous avons obtenu des CSM dérivées de la moelle osseuse comme décrit précédemment et utilisé la RT-PCR pour mesurer l'expression d'ARNm dans les CSM traitées par FMT versus contrôles non traités. Les résultats ont révélé que les CSM traitées par FMT régulaient significativement à la baisse les niveaux d'expression de l'Arg-1, S100A8, S100A9 et p47phox par rapport aux CSM non traitées (Fig. 3a-h). Ensuite, nous avons évalué les niveaux de ROS dans les CSM témoins et les CSM traitées par FMT. Les résultats ont révélé que les CSM traitées par FMT affichaient un niveau de ROS significativement plus bas que les cellules témoins (Fig. 3i, j). Nous avons ensuite comparé les changements dans les sous-populations de CSM dans les groupes traités par FMT et non traités. Les résultats ont montré que la FMT diminuait le pourcentage de G-CSM, avec une légère augmentation des M-CSM également observée (Fig. 3k, l).
La FMT favorise la différenciation des CSM en macrophages
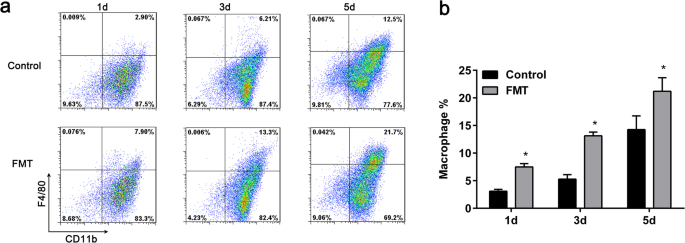
Pour déterminer si la FMT stimule la différenciation finale des CSM en macrophages, nous avons traité les cellules avec 1000 μg/mL FMT au jour 0 et effectué la cytométrie de flux pour les marqueurs associés aux macrophages CD11b et F4/80 aux jours 1, 3 et 5. Les résultats ont montré qu'un jour après l'ajout de 1000 μg/mL FMT, la proportion de macrophages augmentait significativement de plus de 2 fois par rapport aux cellules non traitées. De même, 3 jours et 5 jours après le traitement par FMT, les proportions de macrophages étaient également significativement augmentées (Fig. 4a, b).
La FMT améliore les symptômes chez les souris septiques induites par le LPS
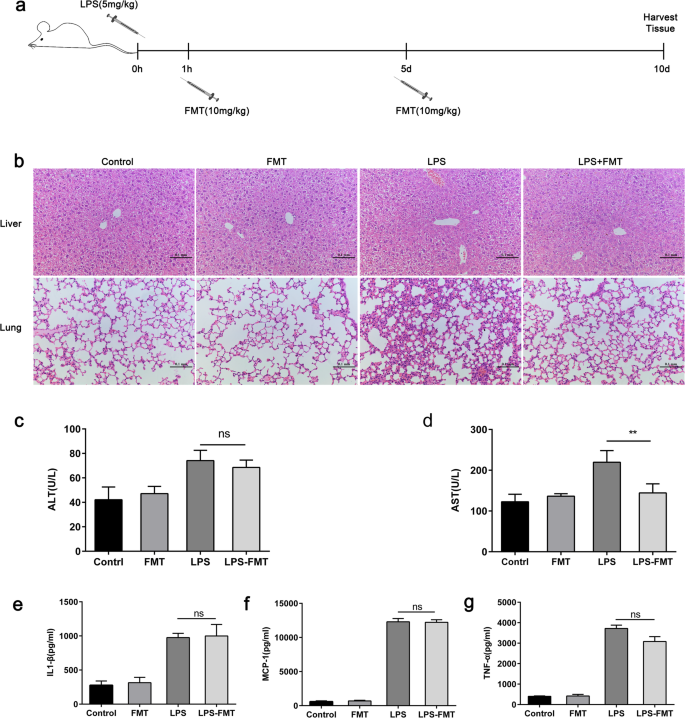
Il a été rapporté que la septicémie est associée à des dommages tissulaires et mène à l'insuffisance organique et à la dysfonction endothéliale [17]. Pour investiguer si la FMT réduit les symptômes de la septicémie tardive, l'étendue des dommages organiques chez les souris expérimentales a été évaluée après 10 jours. Un examen histopathologique des poumons dans la septicémie induite par le LPS a indiqué que la FMT réduisait le recrutement des globules blancs et l'épaississement de la paroi alvéolaire par rapport aux souris traitées par le véhicule. La coloration H&E a également révélé que la zone de nécrose hépatique était plus petite chez les souris traitées par la FMT par rapport aux souris témoins (Fig. 5a, b). De plus, les taux sériques d'aspartate aminotransférase, utilisés comme marqueur biochimique de dysfonction hépatique chez ces animaux, étaient significativement plus bas dans les foies des souris traitées par la FMT par rapport au contrôle (Fig. 5c). Cependant, la FMT n'affectait pas les taux d'alanine aminotransférase (Fig. 5d). De plus, la septicémie étant associée à des résultats défavorables tels que la production élevée de cytokines inflammatoires, nous avons évalué les changements dans les niveaux de cytokines pro-inflammatoires dans le sérum. Le taux de TNF-α dans le sérum était légèrement, mais non significativement, plus bas chez les souris traitées par la FMT à 3 h après l'injection de LPS, et aucune différence dans les taux de MCP-1 ou IL-1β n'était observée entre les souris traitées par la FMT et les souris traitées par le véhicule (Fig. 5e-g).
La FMT diminue le nombre de CSM dans la rate de souris septiques induites par le LPS
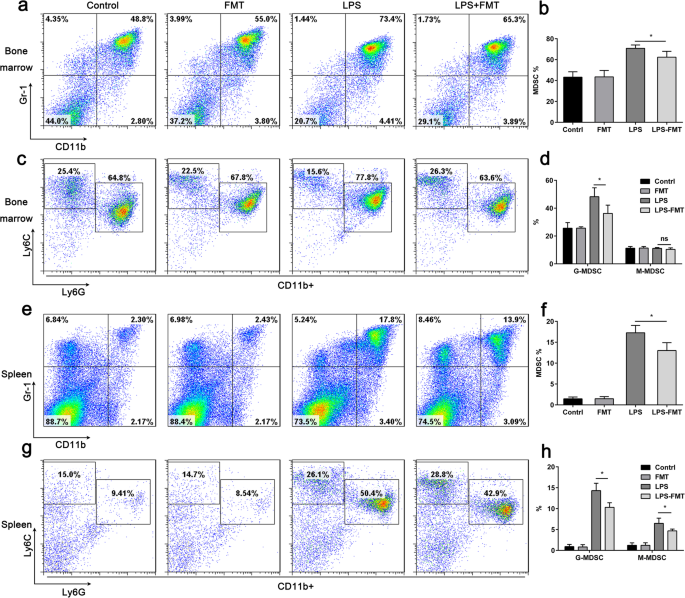
Des preuves croissantes soutiennent que l'immunosuppression associée à la septicémie augmente la mortalité [18], et les CSM sont considérées comme un composant majeur du réseau immunosuppressif [8]. Il a été rapporté que les G-CSM sont plus spécifiquement expandues chez les patients septiques et semblent être les principaux acteurs de l'immunosuppression induite par la septicémie [12]. Pour déterminer si la FMT module les populations de CSM chez les souris sauvages, des souris C57BL/6 étaient administrées la FMT par voie veineuse caudale à l'heure 1 et au jour 5. Les résultats ont montré qu'aucune différence significative dans le pourcentage de CSM n'était détectée dans la rate ou la moelle osseuse entre les souris témoins et les souris traitées par la FMT (Fig. 6a, e). Notamment, la FMT diminuait l'expansion dépendante du LPS des cellules CD11b⁺Gr-1⁺ à la fois dans la moelle osseuse et la rate (Fig. 6a, e), ce qui est cohérent avec les études in vitro. De plus, la FMT diminuait également le pourcentage de G-CSM et M-CSM dans la rate, tandis que seul le pourcentage de G-CSM était diminué dans la moelle osseuse (Fig. 6c, g). Ces données indiquent que la FMT diminue le nombre de CSM dans la rate de souris septiques induites par le LPS.
La FMT réduit les propriétés immunosuppressives des CSM sur les cellules T in vivo
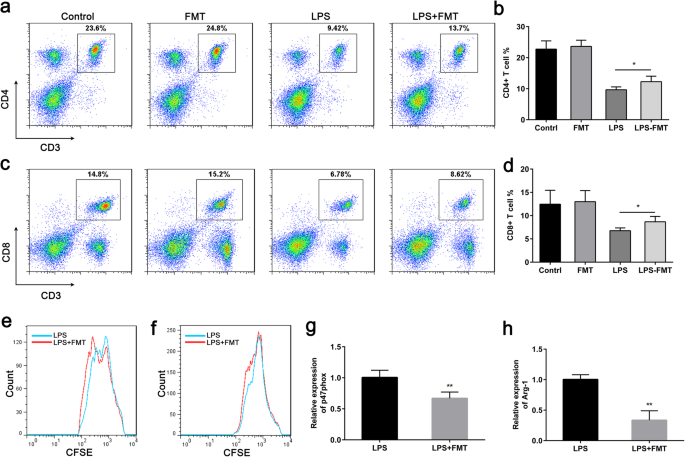
La réduction numérique de multiples populations de cellules immunitaires, y compris les cellules T CD4 et CD8, est une caractéristique majeure de la réponse immunitaire adaptative après la septicémie. Elle est associée à un risque accru de décès, ainsi qu'à d'autres résultats défavorables [19, 20]. Il a été montré que les CSM suppriment la prolifération des cellules T en altérant l'expression de la chaîne zeta des cellules T chez les patients septiques [21]. Pour évaluer la proportion de lymphocytes dans la septicémie au stade tardif, nous avons mesuré la proportion de cellules T CD4 et CD8 dans un modèle murin de septicémie. Les résultats ont montré que la FMT provoquait une augmentation des cellules T CD4 et CD8 dans les rates des souris induites par le LPS (Fig. 7a, b). Il n'y avait pas de différences dans les pourcentages de cellules T CD4 et CD8 dans la rate des souris traitées par la FMT par rapport aux souris témoins (Fig. 7a, b). Pour confirmer davantage le rôle des CSM dans la suppression de la prolifération des cellules T in vivo, les G-CSM et M-CSM étaient isolées des rates de souris traitées par le véhicule ou la FMT et soumises au LPS par MACS et co-cultivées avec des cellules T CD3 à un ratio 1:1. Nos résultats ont montré que le traitement par la FMT réduisait les fonctions immunosuppressives des G-CSM et M-CSM sur les cellules T (Fig. 7e, f). De plus, nous avons également mesuré les niveaux d'expression de l'Arg-1 et p47phox dans les CSM isolées des rates de souris. Comme prévu, l'expression des gènes Arg-1 et p47phox était significativement réduite dans les cellules CD11b⁺Gr-1⁺ spléniques isolées de souris traitées par la FMT et soumises au LPS par rapport aux souris soumises au LPS (Fig. 7g, h). Ces données indiquent que la FMT diminue les fonctions immunosuppressives des CSM en diminuant la production d'Arg-1 et de ROS, suggérant que la FMT pourrait réduire l'immunosuppression à long terme dans la septicémie au stade tardif.
Discussion
Le supplément de fer approuvé par la FDA, la FMT, a été largement utilisé comme vecteur de médicaments et agent de contraste en IRM. Il a été trouvé que la FMT inhibe la croissance du cancer en induisant une réponse immunitaire pro-inflammatoire avec une polarisation des macrophages M1 [3], indiquant que la FMT a des fonctions immunomodulatrices. Dans cette étude, nous avons évalué l'effet de la FMT sur les CSM en comparant le phénotype et la fonction des CSM traitées par la FMT avec des CSM témoins non traitées. Des études précédentes ont montré que les CSM sont capables d'absorber des nanoparticules magnétiques [10], et nos données ont davantage démontré que la FMT atténue les fonctions immunosuppressives des CSM dans la rate via la régulation négative de l'Arg-1 et des ROS. Nos données ont également indiqué que la FMT a un effet direct sur la différenciation des CSM, avec environ un cinquième des cellules se différençiant uniformément en macrophages après 5 jours dans des expériences in vitro. Bien que nous n'ayons pas investigué le phénotype des macrophages exposés à la FMT, nous avons émis l'hypothèse qu'ils étaient du sous-type pro-inflammatoire M1. Les résultats ont clairement démontré que la FMT améliore la différenciation et la maturation des CSM, et suggère donc que cela sous-tend la réduction de la population de CSM que nous avons observée pendant la septicémie tardive.
La septicémie initie une réponse immunitaire complexe qui varie avec le temps et est accompagnée à la fois de réponses pro-inflammatoires et anti-inflammatoires. Des études précédentes ont montré que la mort aux stades précoces de la septicémie est due à une inflammation excessive. Derive et collègues ont rapporté que le transfert adoptif de CSM au jour 10 dans des souris septiques atténuait la production de cytokines péritonéales et améliorait le taux de survie [22]. Plus récemment, Namkoog et al. ont observé que la prétraitement par la clarithromycine améliorait la survie dans un modèle murin de choc induit par le LPS en expandant la population de cellules CD11b⁺Gr-1⁺ [23]. Ils ont décrit que les CSM jouent un rôle protecteur dans la septicémie, cependant, il doit être noté qu'ils concernaient les stades précoces de la septicémie. La plupart des patients atteints de septicémie présentent des signes rapides d'immunosuppression profonde, et les décès dans cette phase sont typiquement dus à l'acquisition d'une infection nosocomiale secondaire, souvent avec des pathogènes opportunistes [24]. Une prolifération excessive des CSM peut faciliter un syndrome physiologique d'immunosuppression persistante, causant de mauvais résultats [25]. McClure et al. ont rapporté qu'ils n'observaient aucun effet protecteur du transfert de CSM une fois que les souris entraient dans l'état immunosuppressif tardif [26]. Ils avaient précédemment montré que les CSM se massivement expandent dans la moelle osseuse, la rate et les ganglions lymphatiques de souris avec des processus septiques en cours et contribuent à la suppression des cellules T induite par la septicémie [11]. De plus, Uhel a rapporté que les M-CSM et G-CSM contribuent fortement à la dysfonction des cellules T chez les patients atteints de septicémie [12]. Nos données ont démontré que la FMT diminuait significativement le pourcentage de CSM et atténuait les fonctions des CSM pour restaurer le nombre de cellules T présentes chez les souris pendant la septicémie tardive. Par conséquent, lors de l'étude du rôle des CSM dans la septicémie, il est crucial de distinguer clairement les stades précoces et tardifs de la septicémie.
Mohus et al. ont suggéré que la carence en fer était associée à un risque accru d'infections sanguines futures causant la septicémie, indiquant que les mécanismes de défense immunitaire peuvent être déprimés par rapport à la séquestration bactérienne du fer dans les environnements à faible teneur en fer [27]. Des controverses montrées dans les études de supplémentation en fer ont rapporté que la thérapie par fer intraveineux était associée à un risque accru d'infection [28]. Il doit être noté que les suppléments de fer diffèrent significativement dans leurs propriétés physico-chimiques, ce qui leur donne des propriétés biologiques différentes [29]. Avec la FMT, un noyau de fer est enveloppé dans une enveloppe de glucides, ce qui mène à une faible toxicité, une absorption et une dégradation lysosomales [30, 31]. Il a été rapporté que la FMT ne cause pas de toxicité hépatique chez les patients ou les modèles animaux et est généralement métabolisée dans les 2 mois [32]. Nos données ont montré que la FMT n'augmente pas la production de cytokines inflammatoires dans la septicémie précoce, indiquant que la FMT peut être administrée dans la septicémie.
Conclusion
Cette étude a démontré une nouvelle propriété immunomodulatrice de la FMT ; cependant, des études supplémentaires sont nécessaires pour élucider le mécanisme de suppression des CSM par la FMT. De plus, nous fournissons une approche thérapeutique attrayante pour le traitement de l'immunosuppression associée à la septicémie et le ciblage des CSM pourrait fournir une nouvelle option prometteuse pour restaurer la réponse immunitaire pendant la septicémie.
Disponibilité des données et matériaux
Les ensembles de données utilisés et/ou analysés au cours de l'étude actuelle sont disponibles auprès de l'auteur correspondant sur demande raisonnable.
Abréviations
- ALT :
- Alanine aminotransférase
- Arg1 :
- Arginase 1
- AST :
- Aspartate aminotransférase
- FMT :
- Ferumoxytol
- G-CSM/PMN-CSM :
- CSM polymorphonucléaires/granulocytaires
- HE :
- Hématoxyline-éosine
- IL-1β :
- Interleukine-1β
- iNOS :
- Synthase de l'oxyde nitrique inducible
- LPS :
- Lipopolysaccharide
- MCP 1 :
- Protéine chimiotactique des monocytes 1
- CSM :
- Cellule suppresseur dérivée de la lignée myéloïde
- MHC II :
- Complexe majeur d'histocompatibilité
- M-CSM :
- CSM monocytaires
- PBS :
- Solution saline phosphate-tamponnée
- ROS :
- Espèces réactives de l'oxygène
- TLR :
- Récepteur de type Toll
- TNF-α :
- Facteur de nécrose tumorale α
Nanomatériaux
- Démystifier la porte XOR : La fonction OU exclusif en logique numérique
- Maîtriser les fonctions en C : Fonctions définies par l'utilisateur et bibliothèque standard
- PCB miniaturisés : Équilibrer forme, fonction et fiabilité dans l'électronique moderne
- Würth Elektronik lance chat en direct pour support expert instantané multi-marchés
- Les ingénieurs d'IBM développent un thermomètre nanoscopique, permettant une cartographie thermique précise des dispositifs quantiques
- Mesure de la signature magnétique du noyau d'un atome unique
- Visualisation du carbone dissous océanique à l'échelle atomique
- Rôle du pressostat de contre-pression dans les installations frigorifiques
- Rôles clés des fluides hydrauliques : Assurer un fonctionnement efficace et prévenir les pannes